Вкусы и предпочтения: дофаминовый мост между ЖКТ и мозгом
Наше отношение к еде отражает индивидуальные гастрономические предпочтения. Одни продукты покоряют с первого укуса и остаются любимыми на всю жизнь, другие поначалу вызывают неприязнь, но со временем обретают поклонников. Показательный пример — кофе: его насыщенный горький вкус при первом знакомстве нравится далеко не всем, однако напиток входит в число самых популярных в мире. Ученые из Калифорнийского университета в Сан-Франциско исследовали малоизученный дофаминергический путь, связывающий пищеварительную систему с мозгом. Как он устроен и какую роль играет в формировании вкусовых предпочтений? Обратимся к результатам работы.
Предпосылки исследования
Сведения о пище организм получает в процессе ее употребления. Так, животные начинают предпочитать высококалорийные продукты, ощутив их действие уже после проглатывания. В основе такого обучения лежат сигналы, возникающие на всем протяжении пищеварительного тракта — от языка до кишечника. Одна из ключевых задач исследователей заключается в том, чтобы понять, как мозг объединяет эти разнообразные интероцептивные сигналы в целостное представление о съеденной пище.
Ранее было показано, что между сенсорными сигналами из ротовой полости и желудочно-кишечного тракта существует особая связь. Например, животных можно научить слизывать ароматизированный раствор, но не нажимать на рычаг для непосредственного введения питательных веществ в желудок. Это указывает на возможное существование врожденных нейронных путей, связывающих оросенсорные сигналы с сигналами из желудочно-кишечного тракта.
Нейроны VTADA играют важную роль в усвоении связи между сигналами и вознаграждением. Хотя традиционно их изучали преимущественно в контексте экстеросенсорных сигналов, фармакологические исследования свидетельствуют: дофамин также помогает связывать вкус пищи с действием содержащихся в ней питательных веществ. Так, введение антагонистов дофамина в кору головного мозга, полосатое и миндалевидное тела может частично нарушать такое обучение. Однако вклад каждой из этих структур остается неясным. Поэтому авторы работы решили определить клетки, пути и механизмы, участвующие в данном процессе.
Результаты исследования
Дофаминергические нейроны необходимы для обучения, связанного с питательными веществами, но не с токсинами
Изображение №1
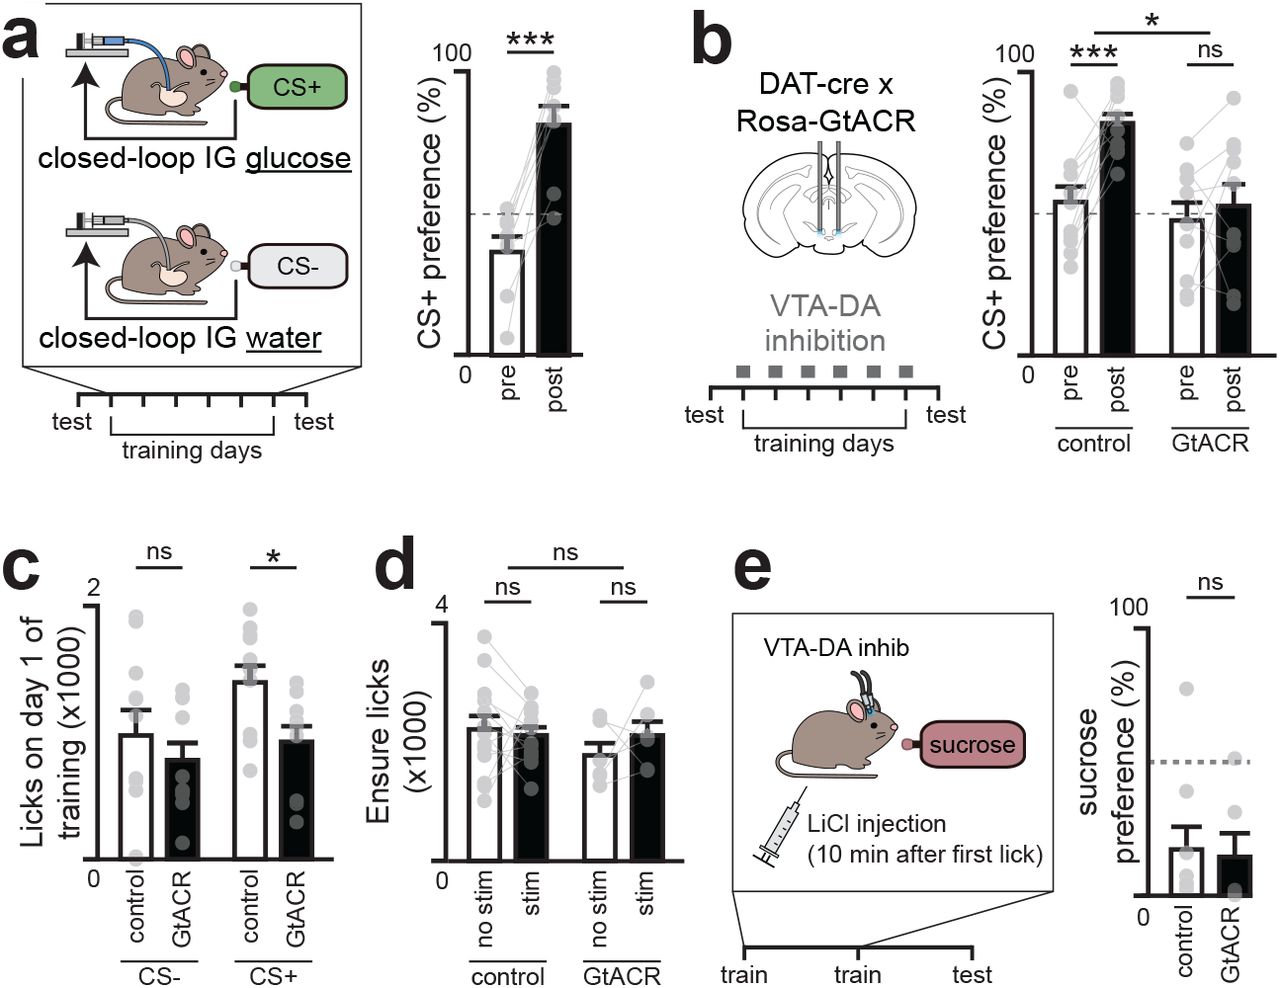
Прежде всего исследователи выяснили, нужны ли дофаминергические нейроны вентральной области покрышки (VTADA, от ventral tegmental area dopaminergic neurons) для формирования связи между вкусом и питательными веществами. Для подавления активности этих клеток использовали ингибиторный опсин stGtACR. В ходе отдельной операции мышам установили внутрижелудочные катетеры (IG, от intragastric), через которые вводили питательные вещества. Затем применили экспериментальную схему замкнутого цикла (closed-loop): животным предложили два раствора с разными вкусами. Облизывание одного сопровождалось введением глюкозы непосредственно в желудок, другого — поступлением такого же объема воды (1a).
Спустя шесть дней обучения предпочтения мышей проверили с помощью теста с двумя поилками. Как и в более ранних исследованиях, животные контрольной группы стали заметно чаще выбирать раствор, связанный с введением сахара: с 35 ± 5% до обучения показатель вырос до 81 ± 7% после него. Напротив, оптогенетическое подавление VTADA на протяжении обучения полностью препятствовало формированию предпочтения: 48 ± 7% до обучения и 53 ± 7% после (1b). При этом подавление активности VTADA не уменьшало потребление пищи с уже известной калорийностью (1d), но снижало потребление пищи, калорийность которой оказывалась выше ожидаемой, например в первый день сочетания определенного вкуса с внутрижелудочным введением питательных веществ (1c). Эти данные позволяют предположить, что VTADA необходимы для пересмотра пищевых предпочтений и изменения объема потребления при получении новой информации о калорийности.
Животные учатся не только предпочитать калорийную пищу, но и избегать токсичных веществ. В основе последнего лежит сходное обучение по последствиям приема пищи — условное избегание вкуса (CFA, от conditioned flavour avoidance). Чтобы проверить участие нейронов VTADA в этом процессе, исследователи подавляли их активность во время формирования CFA: новый вкус сочетали с инъекцией хлорида лития (LiCl), вызывающей висцеральное недомогание (1e). В отличие от формирования предпочтения к питательной пище (1b), обучение избеганию при подавлении VTADA не нарушалось (1e). Следовательно, эти нейроны необходимы для обучения, связанного с питательными веществами, но не для всех форм обучения по последствиям приема пищи.
Питательные вещества избирательно вызывают высвобождение дофамина в BLA
Авторы предположили, что дофаминергические нейроны помогают формировать вкусовые ассоциации, передавая сигнал об обнаружении питательных веществ в кишечнике. Ранее исследования с применением микродиализа выявили вызванное питательными веществами высвобождение дофамина в областях стриатума, в том числе в сердцевине прилежащего ядра (NAc) и дорсолатеральном стриатуме (DLS). Предполагается, что оно отражает вознаграждение после еды. Однако недавно ученые также зафиксировали резкий выброс дофамина после приема пищи в базолатеральном миндалевидном теле (BLA, от basolateral amygdala). Поэтому в новой работе они систематически сравнили высвобождение дофамина в этих областях.
Изображение №2
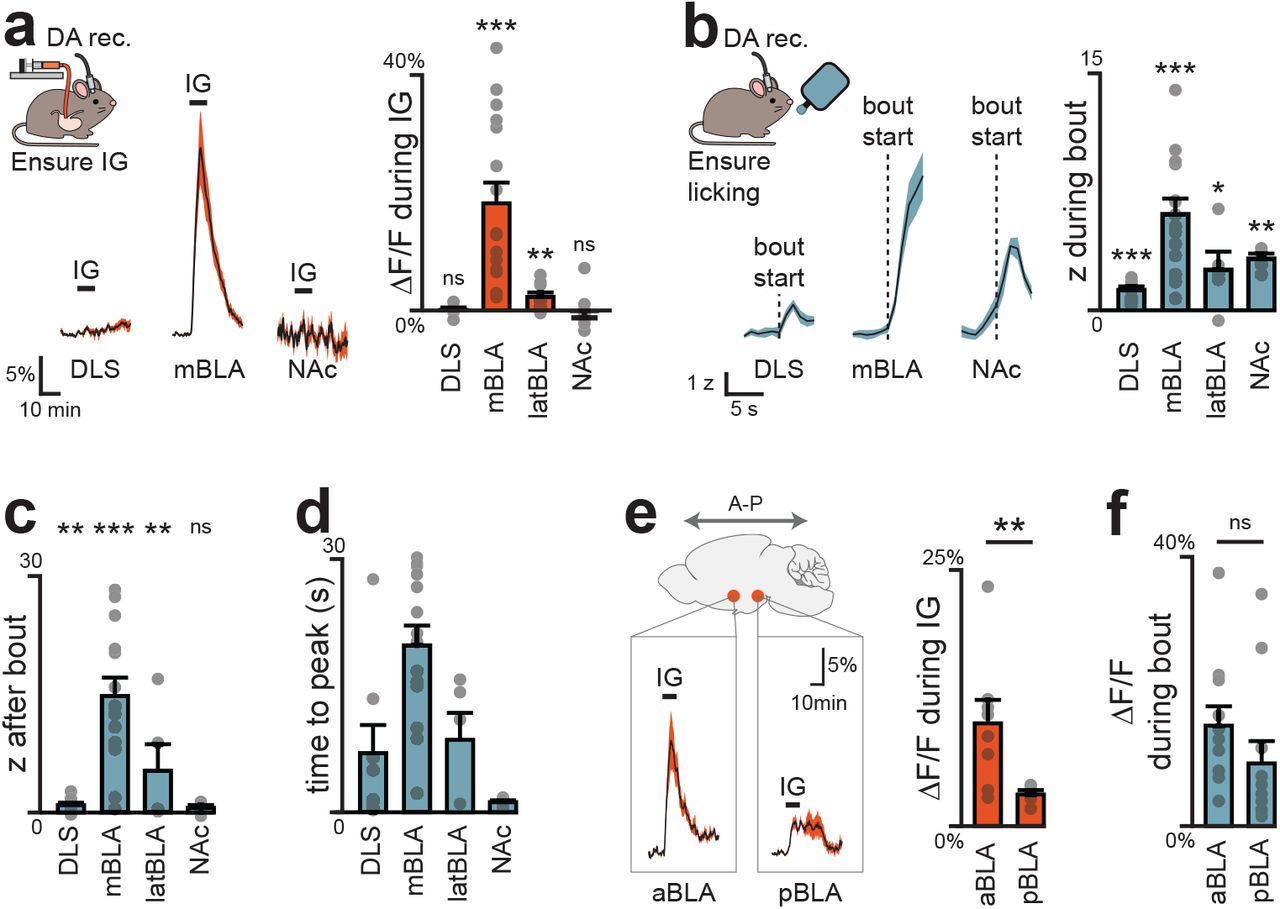
Для волоконной фотометрии внеклеточного дофамина исследователи направили сенсор GRAB-DA3m в NAc, DLS и две области BLA: медиальную (mBLA) и латеральную (latBLA). Во время той же операции животным установили внутрижелудочные катетеры (2a). Введение полноценной питательной смеси Ensure вызвало выраженное высвобождение дофамина в mBLA (18,2 ± 3,5%). Оно начиналось через 48 ± 11 секунд после поступления смеси в желудок и сохранялось на повышенном уровне в течение 9 ± 1 минут после окончания инфузии. Реакция была специфична для питательных веществ: сходный эффект вызывала глюкоза, но не вода (13,5 ± 4,0% против −0,1 ± 0,3%) и не маннитол. Результат не зависел от пола животных: реакция наблюдалась и у самцов, и у самок.
В latBLA вызванное питательными веществами высвобождение дофамина было слабее, а в дорсальном и вентральном стриатуме вовсе не наблюдалось (2a). Это согласуется с прежними данными, согласно которым обнаружение питательных веществ в кишечнике не вызывает выброса дофамина в других ключевых мишенях мезолимбического дофаминергического пути.
Чтобы убедиться, что такая динамика в BLA сохраняется и при естественном приеме пищи, исследователи регистрировали высвобождение дофамина, пока животные самостоятельно пили Ensure (2b). В mBLA оно существенно усиливалось: уровень дофамина постепенно повышался в течение первой минуты и оставался высоким до конца эксперимента (2b–2d). В NAc, напротив, показатель достигал пика почти сразу после начала питья и быстро снижался, что соответствует известной реакции этой области на приятные вкусовые стимулы. В DLS после начала потребления также отмечалось небольшое, но статистически значимое повышение уровня дофамина, которое может согласовываться с результатами прежних исследований методом микродиализа. В целом данные указывают на mBLA как на основную область высвобождения дофамина в ответ на обнаружение питательных веществ в желудочно-кишечном тракте.
Ответ на питательные вещества сосредоточен в передней части BLA
BLA известно своей ролью в присвоении эмоциональной значимости внешним сенсорным сигналам. Особенно подробно она изучена на примере условного страха, но эта структура участвует и в обработке положительно подкрепляющих стимулов. Разные функции связаны с различными субрегионами BLA. У мышей оно простирается примерно на 2,5 мм вдоль ростро-каудальной оси, причем отдельные его участки различаются по цитоархитектонике и связям. Представленность интероцептивных сигналов, в том числе информации о поступивших питательных веществах, в этих субрегионах ранее не изучалась. Авторы обнаружили, что самые сильные дофаминовые ответы на питательные вещества возникают в mBLA — части магноцеллюлярной области, которая достигает переднего отдела BLA. В latBLA, относящемся к более каудально расположенной парвоцеллюлярной области, ответы были значительно слабее.
Затем исследователи подготовили мышей к регистрации уровня дофамина в переднем и заднем отделах BLA, чтобы напрямую сравнить его высвобождение вдоль ростро-каудальной оси (2e).
Введение питательных веществ вызывало существенно более сильный выброс дофамина в переднем отделе, чем в заднем. Например, для смеси Ensure показатели составили 10,0 ± 2,3% и 3,1 ± 0,4% соответственно (2e). При этом высвобождение дофамина в ответ на облизывание — быструю реакцию, не связанную с сигналами из ЖКТ, — было одинаковым в обеих частях BLA. Значит, различия в реакциях на сигналы ЖКТ нельзя объяснить техническими проблемами при регистрации в заднем отделе (2f). Более того, в задней части BLA дофамин преимущественно высвобождался в ответ на неприятные висцеральные сигналы, например после введения хлорида лития (LiCl) или липополисахарида (LPS). Эти воздействия не вызывали аналогичной реакции в переднем отделе. Таким образом, передняя и задняя части BLA отвечают на принципиально разные висцеральные сигналы.
Далее авторы изучили кишечные сенсоры, обнаруживающие питательные вещества и передающие информацию структурам, расположенным выше по пути к BLA. Они предположили, что, если этот путь связывает вкус с питательной ценностью, высвобождение дофамина в переднем отделе BLA должно зависеть от конкретных кишечных рецепторов, участвующих в формировании такой ассоциации.
Для сахаров ключевым сенсором оказался кишечный натрий-глюкозный котранспортер SGLT1. Внутрижелудочное введение его агонистов — глюкозы, галактозы и MDG — вызывало интенсивное высвобождение дофамина в передней части BLA. Маннит и фруктоза, не активирующие SGLT1, такого действия не оказывали. Напротив, блокирование кишечного SGLT1 специфическим антагонистом предотвращало дофаминовый ответ на введенную в желудок глюкозу, подтверждая необходимость этого транспортера. Для жиров важнейшими кишечными сенсорами являются рецепторы GPR40/120 и белок CD36. Блокирование всех трех сенсоров полностью подавляло высвобождение дофамина в передней части BLA при введении жиров. Следовательно, этот ответ зависит от тех же кишечных сенсоров, которые, как известно, обеспечивают формирование связи между вкусом и питательной ценностью пищи.
CCK+ дофаминергические нейроны, проецирующиеся в BLA, преимущественно отвечают на питательные вещества
Изображение №3
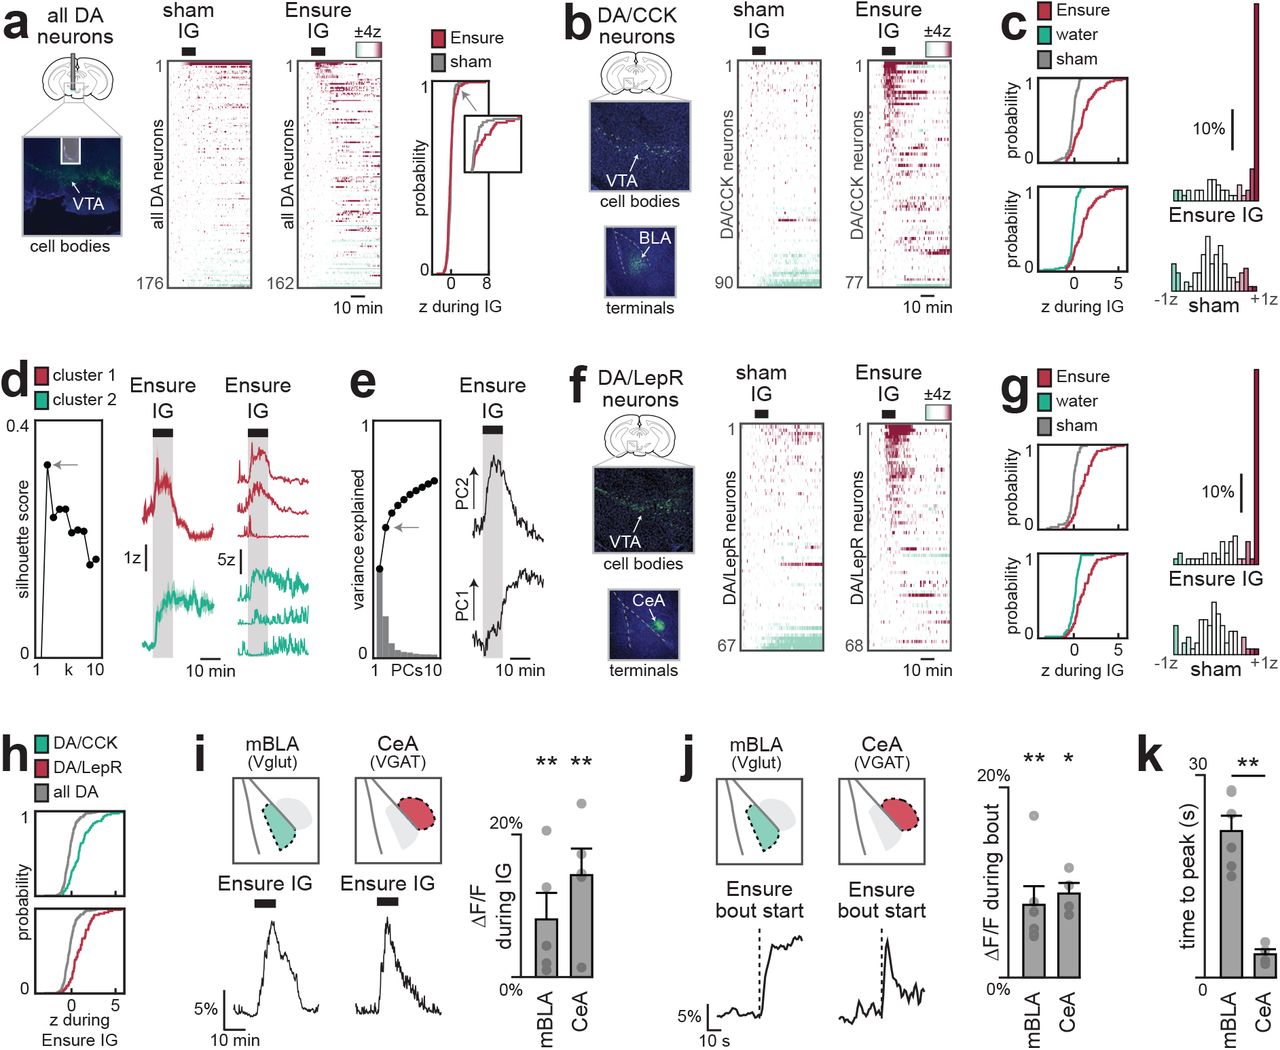
Поскольку питательные вещества вызывали высвобождение дофамина только в переднем отделе BLA, авторы предположили, что за эту реакцию отвечает лишь небольшая часть нейронов VTADA. Одноклеточная кальциевая визуализация подтвердила догадку: во время внутрижелудочной инфузии питательных веществ активировались только 11% этих клеток (3a). Следующей задачей стало определение их типа.
Ранее анатомические исследования показали, что нейроны VTADA, экспрессирующие холецистокинин (VTADA, CCK), преимущественно проецируются в BLA, а клетки VTADA, экспрессирующие рецептор лептина (VTADA, LepR), — в соседнее центральное миндалевидное тело (CeA). С помощью генетической интерсекции ученые обеспечили экспрессию сенсора GCaMP7s в этих популяциях и визуализировали активность отдельных клеток при введении питательных веществ (3b). В согласии с фотометрическими данными большинство нейронов VTADA, CCK — 61% — активировались во время инфузии, а динамика их активности повторяла динамику дофамина в BLA (3c). Уровень кальция в телах нейронов повышался в первую минуту после начала введения и оставался высоким еще много минут после его завершения.
Хотя большинство нейронов VTADA, CCK реагировали на поступление питательных веществ в ЖКТ, характер ответов различался. Кластеризация методом k-средних выявила две популяции: одна активировалась преимущественно во время введения питательных веществ, другая отвечала более продолжительно (3d). Метод главных компонент (PCA, от principal component analysis) также выделил две отчетливые фазы активности: во время инфузии (PC2) и после нее (PC1) (3e). Первой главной компоненты оказалось достаточно, чтобы разделить два кластера, определенных методом k-средних. Таким образом, длительные внутренние сигналы о поступлении питательных веществ представлены двумя субпопуляциями VTADA, CCK с различной динамикой активности.
Нейроны VTADA, LepR тоже демонстрировали выраженный устойчивый ответ на внутрижелудочное введение питательных веществ (3f–3h). Соответственно, такое введение вызывало сильное высвобождение дофамина в CeA (3i). Используя регионально специфичные драйверы Cre — Vgat для CeA и Vglut2 для BLA, — исследователи ограничили присутствие GRAB-DA соответствующими ядрами и подтвердили, что ответ CeA отличается от ответа соседнего BLA. Кроме того, при естественном приеме пищи высвобождение дофамина достигало пика в CeA значительно раньше, чем в BLA: через 3,4 ± 0,7 с против 21,7 ± 2,3 с (3j–3k). Это позволяет предположить, что дофаминовые сигналы в двух структурах выполняют разные функции.
Формирование вкусовых предпочтений обеспечивает дофаминовый путь к передней части BLA
Изображение №4
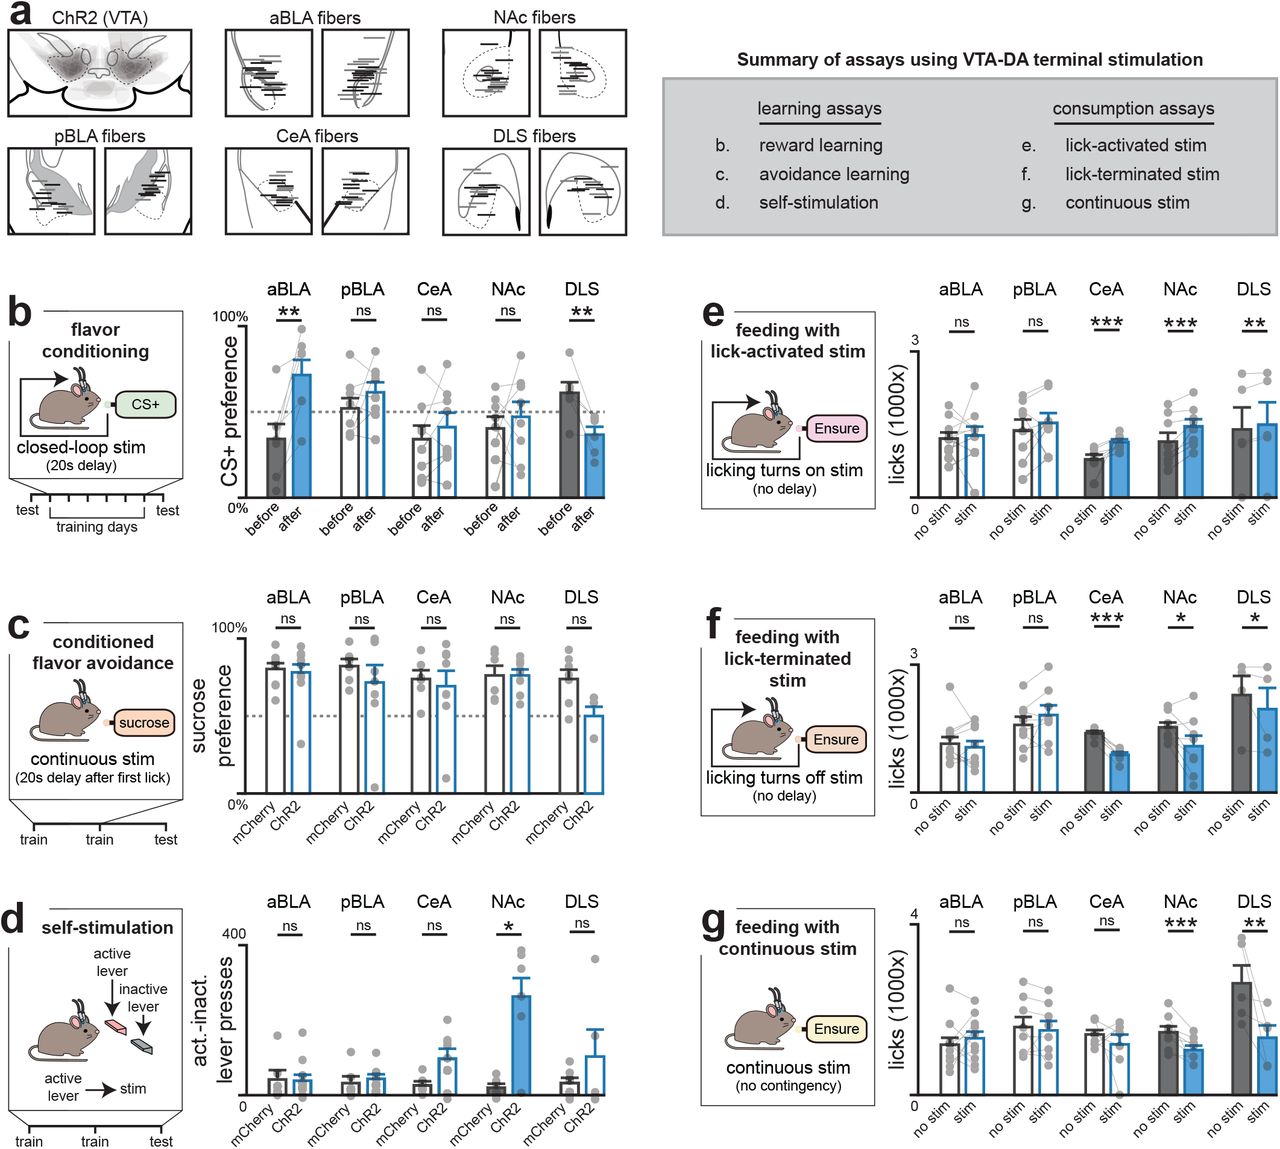
Далее ученые выясняли, какой из дофаминовых путей участвует в обучении связи вкуса с питательной ценностью (4a). Для этого мышей подготовили к оптогенетической стимуляции терминалов VTADA в переднем отделе BLA и в CeA, где питательные вещества вызывают сильное высвобождение дофамина. Также исследовали три контрольные области: задний отдел BLA, реагирующий на неприятные висцеральные сигналы, а также NAc и DLS, важные для других форм обучения, опосредованных дофамином.
Авторы предположили: если высвобождение дофамина в определенной области определяет вкусовые предпочтения, его искусственная стимуляция должна заменить внутрижелудочное введение питательных веществ. Мышам предложили два некалорийных раствора с разными вкусами. Употребление одного сопровождалось стимуляцией с задержкой в 20 секунд, а другого — нет. Отсроченное высвобождение дофамина в передней части миндалевидного тела действительно сформировало устойчивое предпочтение связанного с ним вкуса (4b). Стимуляция аксонных терминалов в остальных областях такого эффекта не дала. Следовательно, активации проекции к передней части BLA достаточно для формирования вкусового предпочтения.
Для проверки специфичности результата тех же мышей подвергли серии тестов, оценивавших различные стороны пищевого поведения и подкрепления. Стимуляция аксонных терминалов в передней части BLA не влияла на общее потребление пищи независимо от режима оптогенетического воздействия — непрерывного или замкнутого по циклу относительно начала или окончания облизывания. Не вызывала она и избегания связанного с ней вкуса (4c). Этот путь также не поддерживал самостимуляцию, то есть не служил подкреплением в отсутствие вкусового сигнала (4d). Таким образом, высвобождение дофамина в переднем отделе BLA влияет на пищевое поведение прежде всего через обучение вкусу.
Хотя в CeA наблюдалась похожая динамика дофаминового ответа на питательные вещества, стимуляция пути VTA–CeA не приводила к обучению на основе вкуса (4b). Зато она усиливала текущее пищевое и питьевое поведение, что согласуется с предполагаемой подкрепляющей функцией дофамина в этой структуре (4e–4g). Похожие эффекты возникали при стимуляции пути к NAc. Высвобождение дофамина в DLS, напротив, снижало предпочтение связанного вкуса: с 61,1 ± 6,2% до обучения до 36,7 ± 6,4% после него (4b). Также наблюдалась тенденция к условному избеганию вкуса: предпочтение сахара снизилось с 73,9 ± 6,0% до 50,0 ± 6,0% (4c). В совокупности результаты указывают на двойную диссоциацию: обучение вкусовым ассоциациям при отсроченной стимуляции обеспечивает только путь к переднему отделу BLA, тогда как другие аспекты мотивации и подкрепления опосредуются классическими дофаминергическими путями.
Нейроны BLA объединяют вкусовые сигналы и сигналы, возникающие после приема пищи
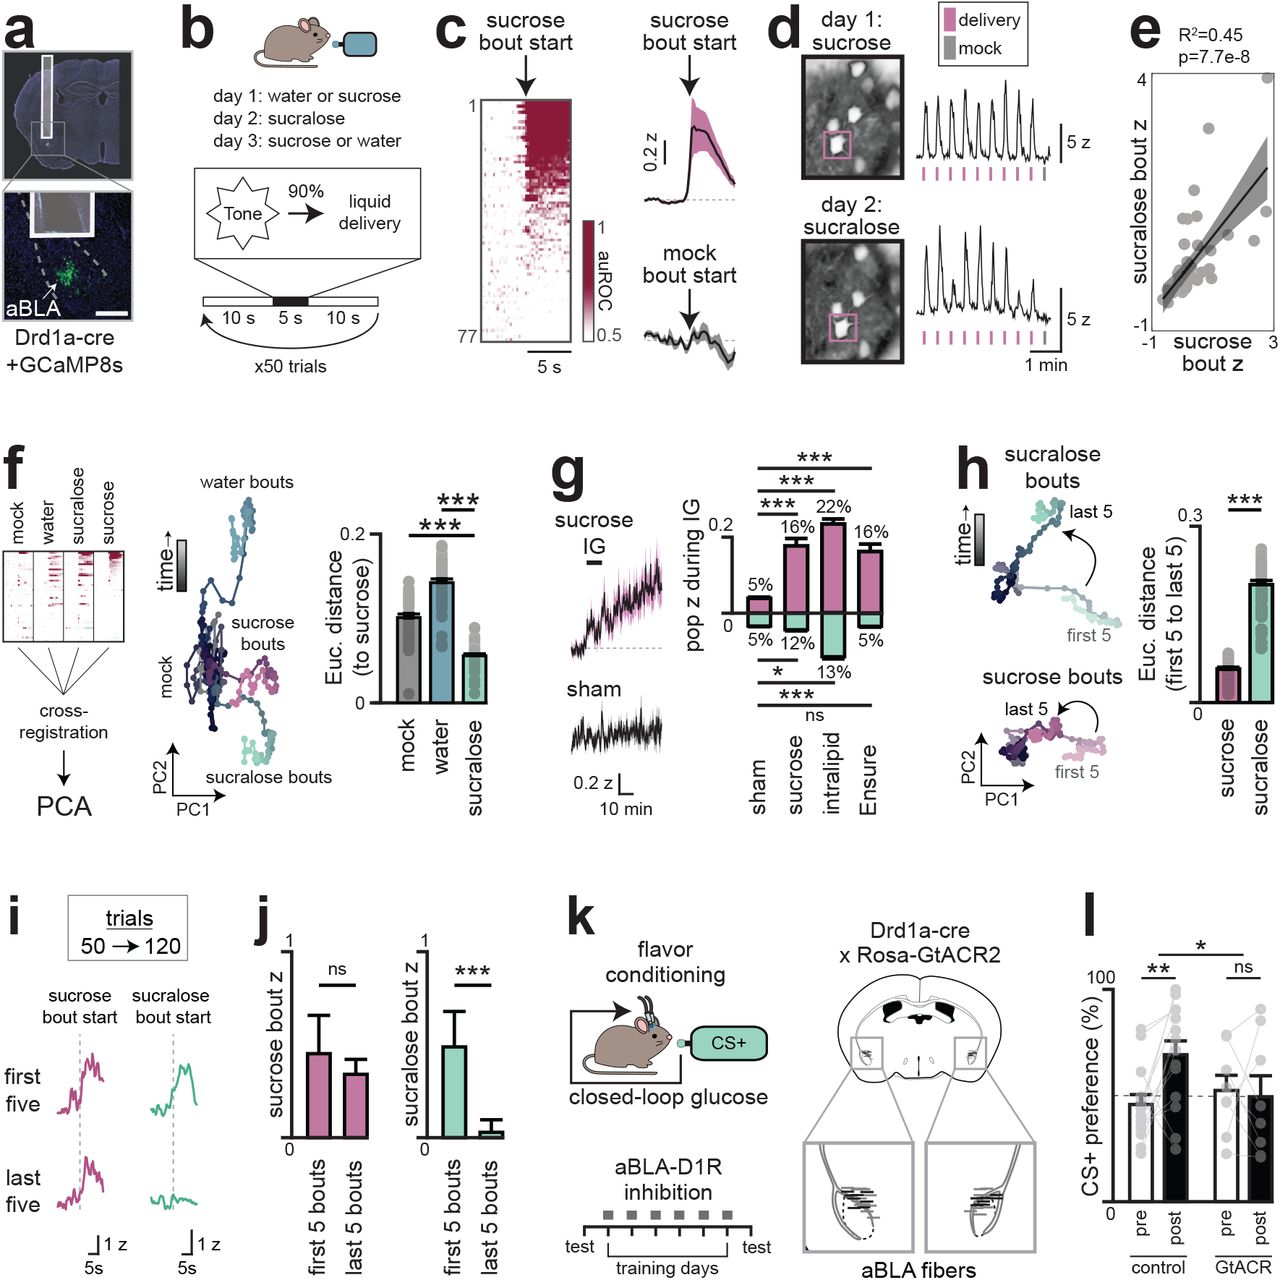
Выяснив, что питательные вещества вызывают высвобождение дофамина в передней части миндалевидного тела и тем самым управляют обучением вкусу, ученые обратились к вопросу интеграции соответствующих сигналов. В предварительных опытах внутрижелудочное введение питательных веществ не формировало предпочтения, если было отделено во времени от связанного с ним вкуса. Это указывает на необходимость перекрытия сигналов. Исследователи подготовили мышей для двухфотонной визуализации нейронов передней части BLA, экспрессирующих дофаминовый рецептор 1 (D1R), который отмечает большинство реагирующих на дофамин клеток миндалевидного тела (5a). Затем они изучили, как эти клетки объединяют текущие вкусовые сигналы и информацию о питательных веществах.
Изображение №5
Сначала авторы выделили ответы BLA на вкусовые стимулы, регистрируя активность в тестах с кратковременным, пятисекундным доступом к жидкости. Каждая проба начиналась со звукового сигнала. Животным предлагали сахарозу, низкокалорийный подсластитель сукралозу или воду. Чтобы отделить вкусовую реакцию от ответа на звук и само облизывание, в 10% контрольных проб сигнал подавали без последующего доступа к жидкости (5b).
При употреблении сахарозы активировались 58% нейронов передней части BLA (BLAD1R), причем эта реакция была тесно привязана к началу облизывания: пик наступал через 3,4 ± 0,3 с после первого облизывания в каждой серии (5c). В контрольных пробах без жидкости активация была слабой: 1,0 ± 0,2 z для сахарозы против 0,08 ± 0,09 z в контроле. Различия сохранялись и после поправки на число облизываний, что указывает на их связь именно с потреблением вещества. Ответы на сахарозу и сукралозу сильно коррелировали как для отдельных нейронов (5d–5e), так и для динамики всей популяции (5f). Вода же вызывала значительно более слабую активацию и иную траекторию популяционной активности (5f). Следовательно, многие нейроны передней части BLA избирательно реагируют на сладкий вкус.
Затем исследователи регистрировали активность нейронов передней части BLAD1R во время и после внутрижелудочного введения сахарозы, чтобы изучить сигналы, возникающие после приема пищи. Активность медленно нарастала в ходе введения сахарозы, но не при введении плацебо, воды или непитательного маннитола (5g). Сходный рост наблюдался после введения Интралипида или Ensure, что подтверждает связь реакции именно с питательными веществами.
Ученые также выясняли, как отдельные нейроны объединяют фазовый сигнал сладкого вкуса и тонический сигнал обратной связи от ЖКТ. Они предположили, что, если обучение происходит в передней части BLA, питательные вещества могут менять силу ее ответа на вкус. Действительно, реакция на облизывание непитательной сукралозы в течение одной сессии ослабевала, тогда как ответ на сахарозу оставался стабильным и у отдельных клеток, и на уровне популяции (5h–5j). Это указывает на объединение вкусовых сигналов и сигналов о питательных веществах в одних и тех же клетках передней части BLA. Такая интеграция усиливает реакцию на вкусы, связанные с калориями.
Полученные данные позволяли предположить, что нейроны передней части BLAD1R играют решающую роль в обучении оценке питательной ценности. Для проверки их активность оптогенетически подавили во время обучения связи вкуса с питательными веществами. В результате мыши полностью утратили способность усвоить, какой вкус связан с получением калорий (5k–5l). При этом подавление не уменьшало потребление Ensure голодными животными, то есть эти клетки не необходимы для самого приема пищи. Однако оно снижало потребление некалорийного раствора, недавно связанного с внутрижелудочным введением глюкозы. Значит, нейроны важны для пересмотра ценности вкуса, когда питательная ценность пищи еще неопределенна. Эффект был специфичен: подавление клеток не препятствовало CFA, другой форме обучения по последствиям приема пищи. Таким образом, нейроны передней части BLAD1R объединяют вкусовую информацию с сигналами о питательных веществах, помогая присваивать ценность калорийной пище.
Поступление питательных веществ преимущественно активирует левое базолатеральное миндалевидное тело (BLA)
Все предыдущие измерения проводились в левом миндалевидном теле. Между тем существуют данные, что неприятные стимулы, например вызывающие страх или боль, преимущественно активируют правое. Поэтому исследователи сравнили ответы правого и левого BLA на введение питательных веществ непосредственно в ЖКТ. Медленная реакция на питательные вещества, развивавшаяся в течение минут, оказалась сильнее слева: 18,2 ± 3,5% против 5,3 ± 1,0%. Быстрая реакция на облизывание, напротив, была более выражена справа. Результат подтвердили одновременной регистрацией в обоих полушариях у новой группы мышей. Следовательно, у этих животных поступление питательных веществ вызывает высвобождение дофамина преимущественно в левом BLA.
Авторы также проверили, участвует ли левое BLA человека в обработке информации о поступивших питательных веществах. Ранее было показано, что после употребления молочного коктейля в BLA высвобождается дофамин, однако выборка того исследования была слишком мала для оценки абсолютных межполушарных различий. В новой работе с помощью функциональной МРТ ученые проверили гипотезу о латерализации активности BLA после приема пищи. Участники пили раствор глюкозы или воду, а исследователи регистрировали BOLD-сигналы во время и после употребления жидкости. После приема раствора активность левого BLA была выше, чем правого. Это указывает на участие левого BLA в обработке сигналов о питательных веществах как у мышей, так и у людей.
Исследователи рассмотрели два возможных объяснения латерализации. Согласно первому, она связана с асимметрией сенсорных сигналов, поступающих в мозг. В пользу гипотезы говорят известные функциональные различия левого и правого блуждающих нервов. Чтобы ее проверить, ученые удаляли блуждающий нерв с одной стороны тела и измеряли дофаминовые ответы в обоих BLA. Удаление любого из нервов ослабляло реакцию на питательные вещества в обоих полушариях. Это не поддерживает предположение о том, что латерализация возникает благодаря отдельным асимметричным путям передачи сигналов.
Другое возможное объяснение — нисходящая регуляция по принципу top-down. Его косвенно поддерживает то, что островковая кора, или инсула, тесно связанная с BLA, асимметрично реагирует на неприятные висцеральные стимулы. Для сравнения входящих сигналов правого и левого путей VTADA→BLA ученые ввели Cre-зависимый вирус псевдобешенства PRV-Introvert-mCherry в левое или правое BLA мышей линии DAT-Cre. Вирус распространяется ретроградно примерно на один синапс в сутки. Через четыре дня исследователи визуализировали весь мозг и составили карту нейронов. Наиболее выраженный сигнал обнаружили в висцеральной коре — области инсулы, для которой известна функциональная латерализация. Среди десяти других наиболее значимых областей оказались несколько взаимосвязанных структур, участвующих в процессах высшего порядка. Эти результаты указывают на необходимость дальнейшего изучения сети «инсула — миндалевидное тело», чтобы понять происхождение латерализации.
Подробности работы можно найти в [докладе ученых](https://www.biorxiv.org/content/10.1101/2025.02.09.637334v3.full).
Эпилог
В этой работе ученые описали ранее малоизученный дофаминергический путь, соединяющий пищеварительную систему с мозгом. Он помогает формировать пищевые предпочтения, позволяя мозгу усваивать сведения о питательной ценности продукта уже после его употребления. В отличие от быстрых дофаминовых сигналов, возникающих при виде привлекательной еды, этот механизм действует медленно и способен влиять на вкусовые ассоциации в течение нескольких минут.
В опытах на мышах питательные вещества вводили непосредственно в желудок, одновременно отслеживая дофаминовые сигналы в мозге. Это позволило отделить реакцию на питательную ценность от вкусовых ощущений. Исследователи обнаружили продолжительную дофаминовую активность в базолатеральной части миндалевидного тела (BLA), которая участвует в обработке эмоциональной информации и формировании ассоциаций. Нарушение этого пути лишало мышей способности предпочитать новые вкусы, связанные с получением калорий. Напротив, искусственная стимуляция дофаминовых волокон в данной области заставляла животных выбирать даже вкусы, не связанные с питательной ценностью.
Данные исследований с участием людей указывают на возможность сходного механизма в человеческом мозге. Результаты позитронно-эмиссионной томографии (ПЭТ) и функциональной магнитно-резонансной томографии (фМРТ) свидетельствуют об изменениях активности в той же области миндалевидного тела после поступления питательных веществ. И у мышей, и у людей реакция была заметно сильнее в левом полушарии. Причины этой асимметрии пока неизвестны.
Открытие помогает понять, как складываются пищевые предпочтения и почему вкусы, изначально казавшиеся неприятными, со временем могут стать привлекательными. Например, мозг постепенно связывает горечь кофе с бодрящим действием кофеина. Авторы предполагают, что воздействие на выявленный дофаминергический путь в будущем позволит менять пищевые предпочтения, а не только подавлять аппетит. В частности, еще предстоит выяснить, влияют ли на него препараты GLP-1, используемые для снижения веса. Пока это остается гипотезой.
Немного рекламы
Благодарим, что читаете нас! Если вам нравятся наши публикации и вы хотите видеть больше интересных материалов, поддержите нас заказом или порекомендуйте знакомым облачные VPS для разработчиков от $4.99. Также предлагаем созданную нами уникальную альтернативу серверам начального уровня: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? Доступны конфигурации с RAID1 и RAID10, до 24 ядер и до 40GB DDR4.
Dell R730xd вдвое дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас: 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — от $99! Узнайте, как построить инфраструктуру корпоративного класса с серверами Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки.
Похожие статьи
 «Обход»: как Python-разработчик без опыта в геймдеве создал игру о сетях с помощью агентов
 Острова, оказавшиеся частью одного материка
 У молодой звезды нашли лед древнее ее самой
 Как я устроил в квартире вонь, пытаясь разгадать вкус зелёного кофе
 Новый флагманский космический телескоп, возможно, выяснит, одиноки ли мы во Вселенной
 От Dota 2 к новой профессии: как построить карьеру после жизни в игре
 Создан самый быстрый в мире мягкий робот без электроники
 Над большинством городов спутников теперь видно больше, чем звёзд