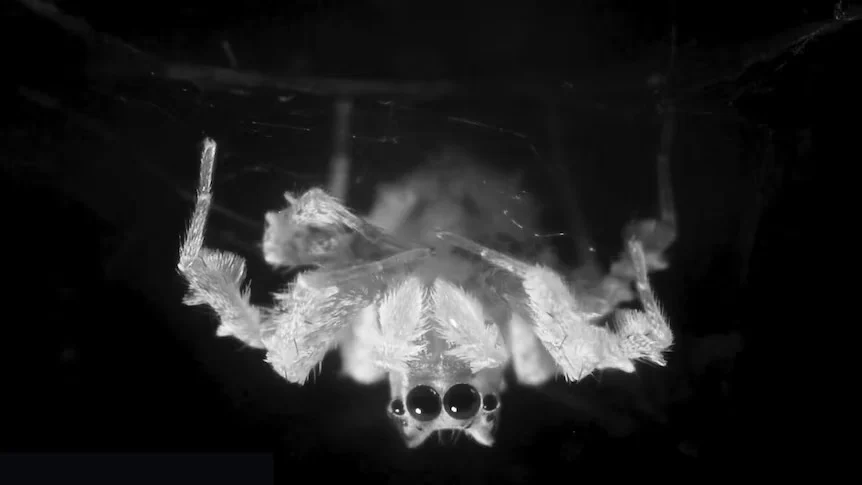
Видят ли пауки мух во сне: исследование фаз сна беспозвоночных
Здесь не действуют законы физики, а точные науки теряют свою однозначность. Тут нет строгой идентичности, привычной логики или очевидного смысла — хотя, возможно, он просто настолько глубок, что остается за гранью понимания величайших мыслителей. Это измерение, где черпают вдохновение, обнажают тайные стремления и переосмысляют само существование. Сновидения и сон — феномен, привычный для подавляющего большинства земных созданий. Тем не менее, до сих пор считается, что сон присущ главным образом позвоночным, тогда как данные о его наличии у иных живых форм крайне фрагментарны. Нейробиологи из Боннского университета (ФРГ) решили исправить этот пробел и доказали: пауки способны погружаться в состояние, поразительно напоминающее человеческий сон. Каким образом ученые пришли к столь неожиданным выводам, какие стадии отдыха зафиксированы у членистоногиих и снятся ли им кошмары о мухах? Ответы на эти вопросы кроются в свежем научном докладе.
Основа исследования
Последние прорывы в сомнологии — в частности, открытие у пауков аналога фазы быстрого сна (REM), выделение двух стадий отдыха у осьминогов, фиксация нейронных паттернов сна у дрозофил, а также свидетельства ночного покоя у книдарий, плоских и круглых червей — убедительно доказывают колоссальное разнообразие форм сна у беспозвоночных. Эти факты указывают на глубокие эволюционные параллели с архитектурой сна, ранее задокументированной исключительно у птиц и млекопитающих. Речь идет о периодах обездвиживания (у мух), сопровождающихся мышечными конвульсиями и окуломоторной активностью (у пауков и головоногих), а также о пигментных метаморфозах кожи за счет хроматофоров (у осьминогов), что удивительно напоминает непроизвольные движения в период REM-фазы у высших животных. Подобные открытия заставили исследователей опираться на расширенный свод поведенческих критериев сна:
-
принятие видоспецифичной позы;
-
состояние поведенческого покоя;
-
быстрая обратимость этого состояния;
-
существенное повышение порога чувствительности к внешним раздражителям.
Вдобавок к этому был введен критически важный пятый критерий — наличие механизмов гомеостатического контроля сна.
Цикл сна и бодрствования управляется двумя согласованными процессами: гомеостатическим (процесс S), который накапливает потребность в отдыхе во время бодрствования и исчерпывает ее во сне, а также циркадным пейсмейкером (процесс C), синхронизирующим суточные ритмы организма с внешней средой. В рамках этой двухкомпонентной концепции гомеостаз выражается в компенсаторном удлинении сна после предшествующего дефицита, в то время как циркадная система удерживает стабильный ритм активности, ориентируясь на внешние маркеры — свет и температуру. Доказательства того, что сон подвержен тонкой регуляции и ритмическому паттернингу у столь непохожих друг на друга таксонов, имеют фундаментальное значение для понимания филогенеза сна и трансформации его функций под воздействием экологических факторов.
Электрофизиологические методы, такие как электроэнцефалография (ЭЭГ) и регистрация локальных полевых потенциалов (ЛПП), по-прежнему выступают эталоном для картирования стадий сна у позвоночных. Однако для подавляющего большинства беспозвоночных эти подходы технически трудновыполнимы. Изучение сна в этой группе долгое время буксовало из-за жесткой привязки академического сообщества к «млекопитающим» стандартам и игнорирования нестандартных поведенческих паттернов. Из-за этого степень изученности сна у беспозвоночных остается критически низкой, а сам факт его существования часто подвергается сомнению, создавая белые пятна в современной биологии. Для построения целостной картины эволюции сна необходимо масштабировать таксономический охват исследований, сопоставляя универсальные законы и видоспецифичные особенности.
Чтобы идентифицировать сон у новых групп животных, исследователи вынуждены полагаться на поведенческие маркеры. Такой методологический базис открывает дорогу для широких сравнительных изысканий. Фокусом текущей научной работы стали пауки — группа организмов, чья сомнологическая специфика до недавнего времени оставалась неисследованной.
Паукообразные представляют собой идеальный объект для изучения сна у не-насекомых членистоногих. Будучи древнейшим классом с богатейшим экологическим и сенсорным разнообразием, они открывают уникальные горизонты для сопоставления сна с поведенческими стратегиями и сенсорной экологией. И хотя еще классические работы Тоблера намекали на сон у скорпионов, комплексная проверка пауков и прочих хелицеровых на соответствие полному перечню критериев сна до сих пор не проводилась. Недавний прорыв в изучении пауков-скакунчиков (Evarcha arcuata) выявил у них регулярные ночные подергивания конечностей и движения сетчатки, поразительно схожие с REM-фазой позвоночных.
Отталкиваясь от этих наблюдений, ученые задались целью проверить, являются ли эти эпизоды частью глубоко регулируемого процесса сна у других представителей отряда. В качестве модельного организма был выбран паук-скакунчик Portia fimbriata — дневной тропический хищник из Квинсленда (Австралия), обладающий развитым интеллектом и полагающийся в основном на визуальное восприятие. Эти пауки отлично адаптированы к лабораторному содержанию и не впадают в диапаузу. Их предсказуемое ночное затишье и сложная зрительная система делают их безупречным объектом для строгого поведенческого анализа.
Исследовательская группа реализовала многоступенчатый протокол верификации сна, включающий:
-
непрерывный мониторинг циркадной активности для оценки эндогенного контроля ритмов «покой — активность» (процесс C);
-
детальный количественный анализ сомнограммы, фиксацию паттернов покоя и REM-подобных фаз, а также определение видоспецифичной позы сна;
-
тестирование порога возбудимости в различных состояниях — проверку снижения чувствительности к стимулам в периоды покоя и REM-подобных фаз, что принципиально отличает сон от пассивного бодрствования;
-
экспериментальную депривацию сна для выявления гомеостатической компенсации («эффекта отдачи»), подтверждающей наличие регуляторного механизма (процесс S).
Данный комплексный подход позволил получить исчерпывающие доказательства наличия полноценного сна у пауков и обосновать их статус в качестве модельных объектов для эволюционной сомнологии.
Результаты исследования
Для детального описания суточных ритмов и сомнопрофиля P. fimbriata биологи задействовали арсенал поведенческих методик: трекинг локомоции, скрупулезный анализ структуры сна, замеры порога пробуждения и эксперименты по лишению сна в изолированных климатических камерах. В работе введен термин «окно сна» для обозначения продолжительных ночных фаз поведенческого покоя, включающих сам сон, REM-подобные эпизоды и интервалы спокойного бодрствования. Старт этого окна отсчитывается с момента принятия позы сна и прекращения перемещений, а финиш совпадает с возобновлением двигательной активности на рассвете.
На первом этапе ученые зафиксировали циклы отдыха и бодрствования, используя отсутствие перемещений как маркер сна, а локомоцию — как маркер активности. Затем была исследована микроструктура сна с высоким разрешением: учитывались поза, стадия неподвижности и REM-подобные проявления. Завершили цикл испытаний измерения порогов пробуждения и эксперименты по прерыванию сна, что позволило окончательно верифицировать физиологическую природу наблюдаемого покоя.
Эндогенная циркадная регуляция активности
Паттерны активности при различных световых режимах за 60 часов непрерывной фиксации отражены на тепловых картах ниже. В условиях стандартного цикла «12 часов света / 12 часов полумрака» (LnD) у абсолютного большинства особей прослеживался четкий суточный ритм: пик активности приходился на светлое время суток, сменяясь затяжным покоем в сумерки.
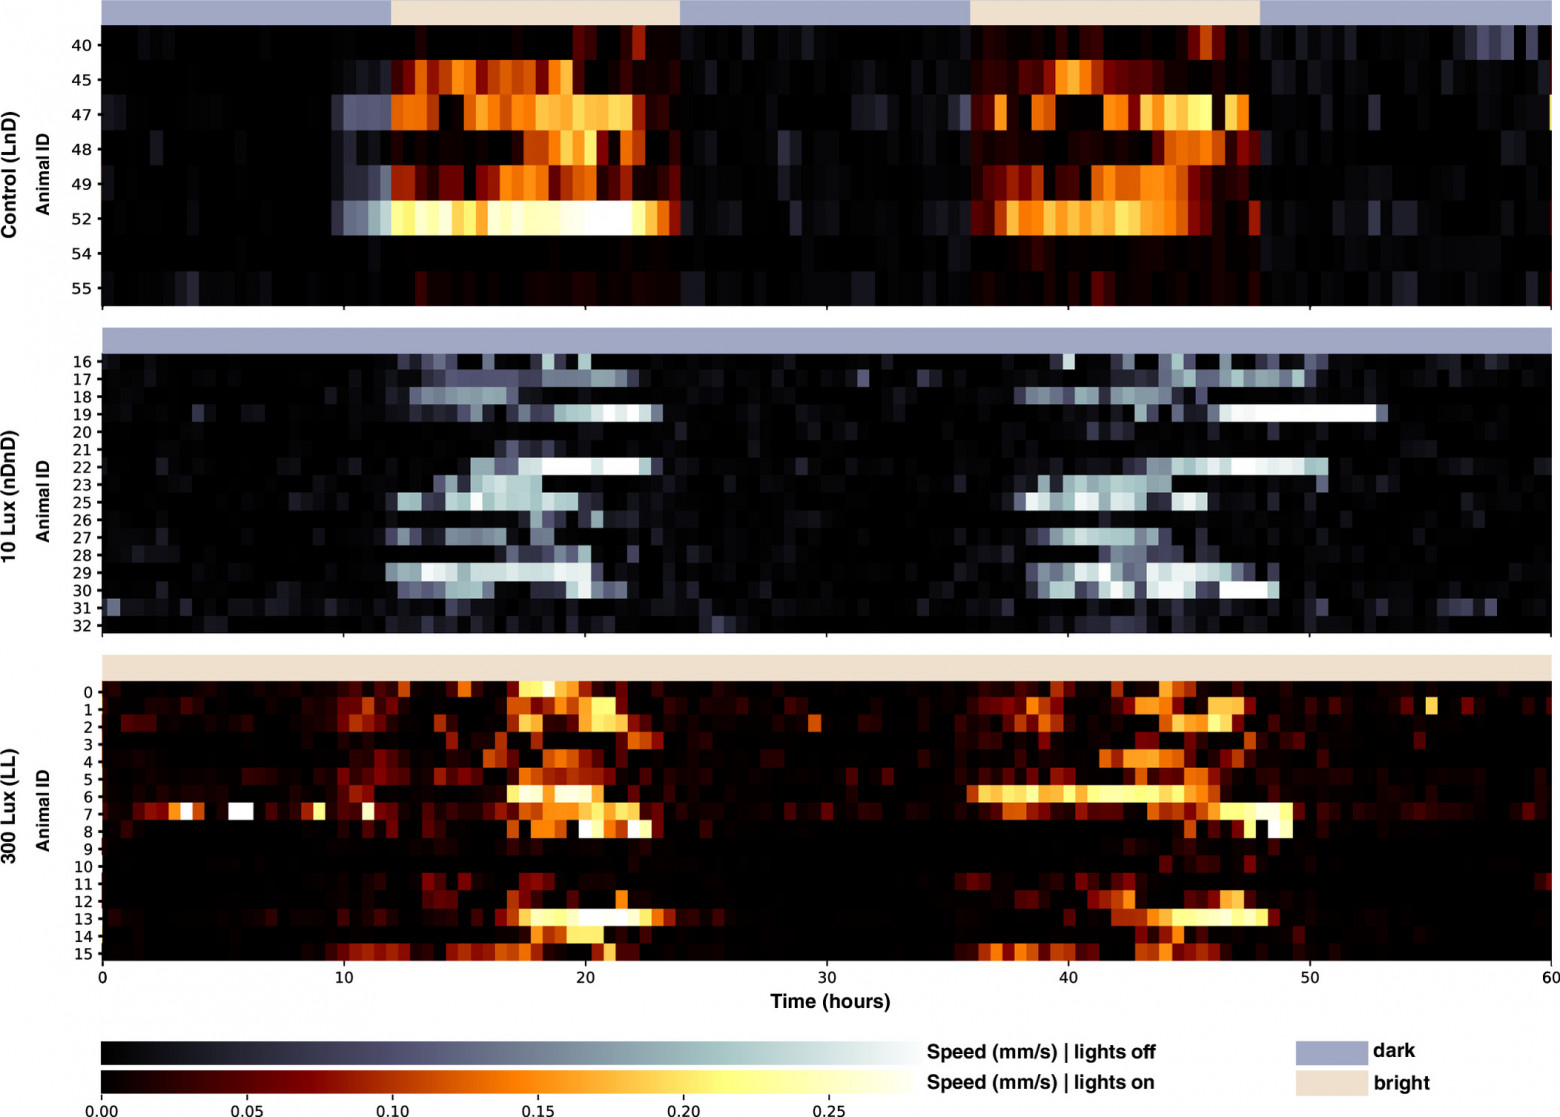
Изображение №1
Аналогичное чередование фаз сохранялось и при постоянном слабом освещении (nDnD) вопреки отсутствию внешних переключений света. Периоды покоя оставались монолитными, а всплески активности происходили строго циклично с суточным интервалом.
В условиях перманентного яркого света (LL) активность на старте выглядела хаотичной, особенно в первый циркадный период (особь №7). Позднее цикличность восстановилась, однако фазы покоя стали менее стабильными и фрагментированными по сравнению с режимами LnD и nDnD.
Несмотря на индивидуальные различия (часть особей предпочитала почти абсолютную неподвижность, тогда как другие двигались интенсивнее), общая циркадная архитектура чередования отдыха и бодрствования оставалась неизменной во всех экспериментальных группах.
Архитектура сна: консолидированный сон и REM-подобные состояния, у P. Fimbriata
Инфракрасная видеосъемка высокого разрешения раскрыла особенности дневного поведения пауков рода Portia. Днем они демонстрировали модель поведения, кардинально отличающуюся от ночной. Хотя они могли подолгу замирать, их нельзя было назвать пассивными: даже в статичном положении они отслеживали обстановку взглядом, меняли позу, реагируя на визуальные стимулы, перемещались, плели коконы или чистили покровы, сохраняя высокий уровень когнитивной бдительности. Эта непрерывная микроактивность резко контрастировала с ночным отдыхом.
Засыпание сопровождалось плавным сворачиванием дневной активности. С наступлением темноты пауки подыскивали укромный участок в паутине и тщательно очищали тело. Заняв позицию, они принимали видоспецифичную позу сна. В отличие от E. arcuata, зависающих в воздухе, Portia неподвижно располагались на горизонтальном паутинном полотне: дорсальная сторона головогруди была обращена книзу, а брюшко слегка провисало — деталь, заметная лишь при покадровом анализе (видео №1). Педипальпы при этом подтягивались и плотно смыкались под просомой, контрастируя с раскинутым положением при бодрствовании (2A). Такой позы пауки придерживались всю ночь.
Видео №1
Все подопытные демонстрировали консолидированный ночной отдых с глубокими фазами неактивности (2B). Окно сна четко накладывалось на темную фазу суточного цикла (2D): погружение в сон происходило в среднем за первые 14 минут темноты (14.0 ± 12.4 мин), а пробуждение совпадало с включением света (−0.3 ± 2.7 мин). Сон протекал монолитно, прерываясь лишь короткими пробуждениями (1.3 ± 0.8 эпизода в час), вызванными сменой позы или грумингом (всего 13.2 ± 8 за ночь со средней длительностью 324.7 с; 2F). Несмотря на это, сон занимал львиную долю ночи (10.7 ± 0.5 часа; 2D).
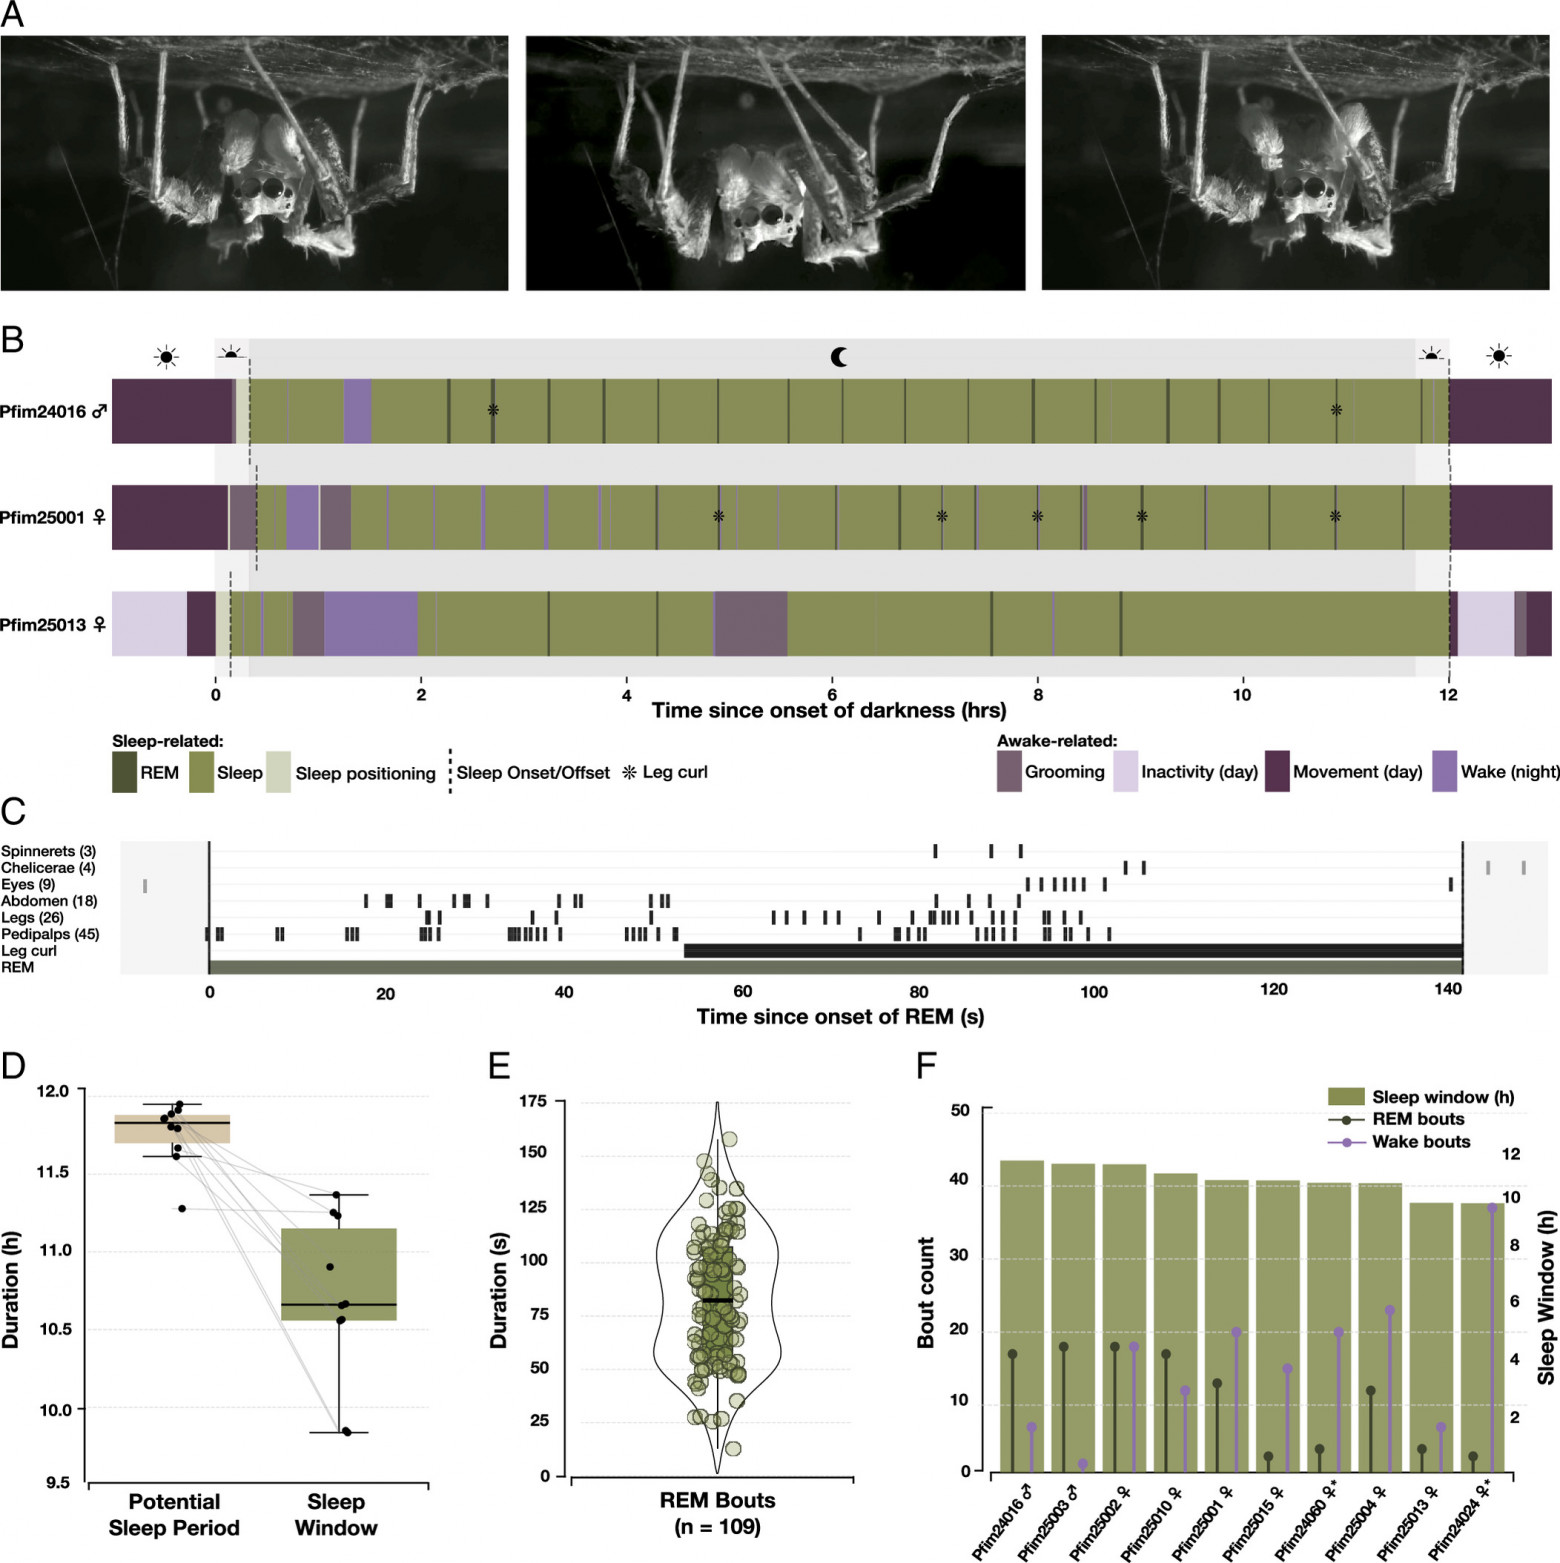
Изображение №2
Периоды глубокого покоя периодически прерывались кратковременными фазами, сопровождающимися быстрыми движениями глаз, мышечными подергиваниями и поджиманием конечностей — феноменом, ранее зафиксированным у E. arcuata в качестве аналога REM-сна (2B, 2C, видео №1).
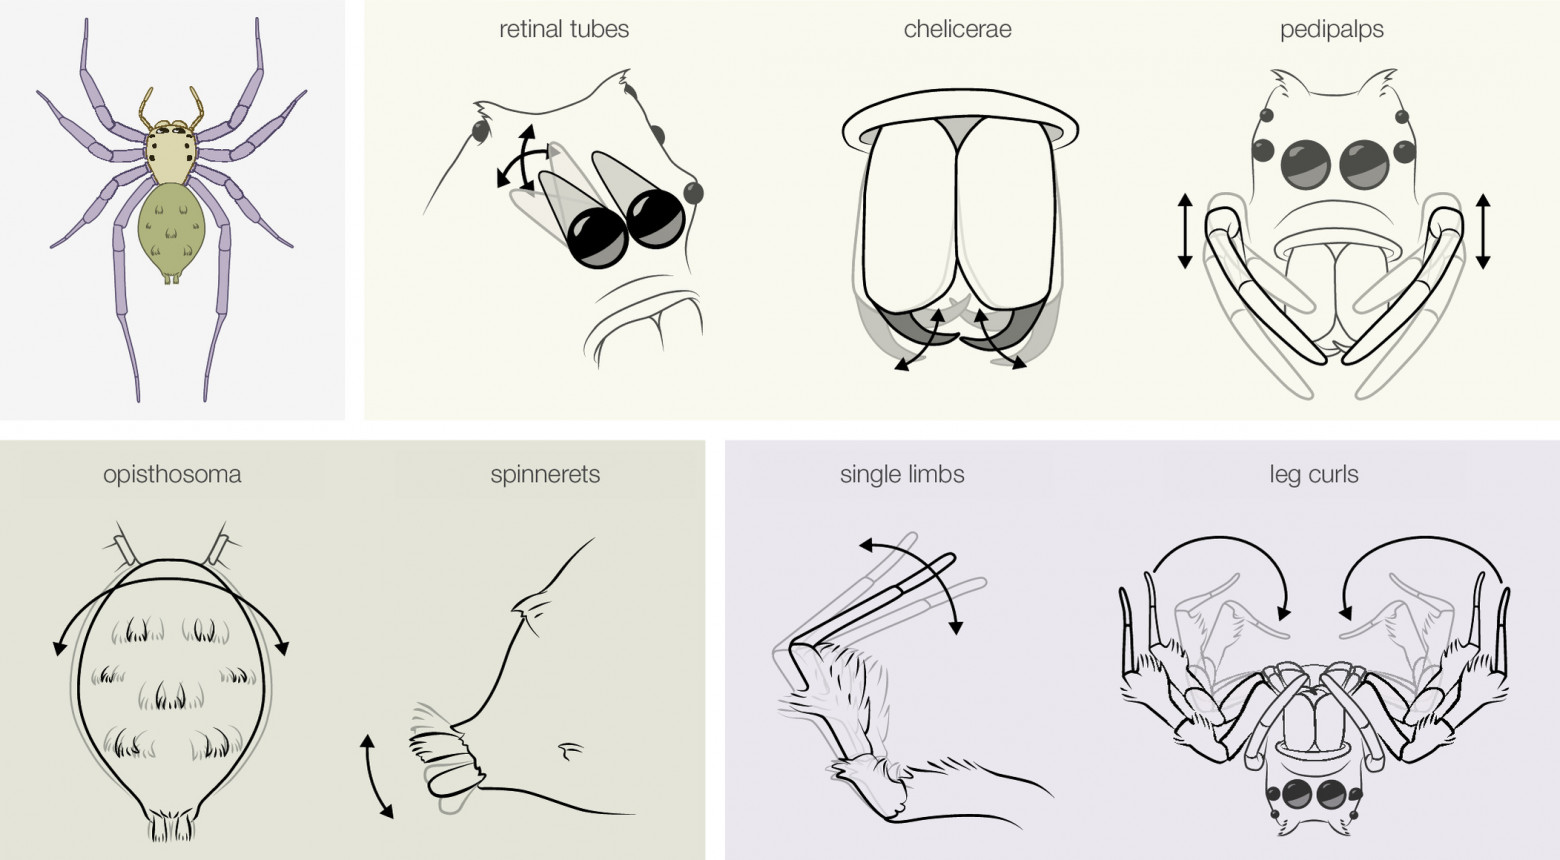
Примеры проявлений REM-подобных состояний во время сна
У всех десяти особей было зарегистрировано в сумме 109 таких эпизодов. На каждого паука приходилось в среднем 10.9 ± 6.7 эпизодов за ночь длительностью по 82.6 ± 14.7 секунд каждый (2E). Первый подобный эпизод наступал спустя примерно 4 часа после засыпания (240.0 ± 184.7 мин, разброс от 68 до 600 мин), демонстрируя высокую индивидуальную вариабельность. Примерно в 38.8% случаев наблюдалось подтягивание лап, что практически идентично показателям E. arcuata (39.5%).
Порог возбуждения: различия в зависимости от функционального состояния
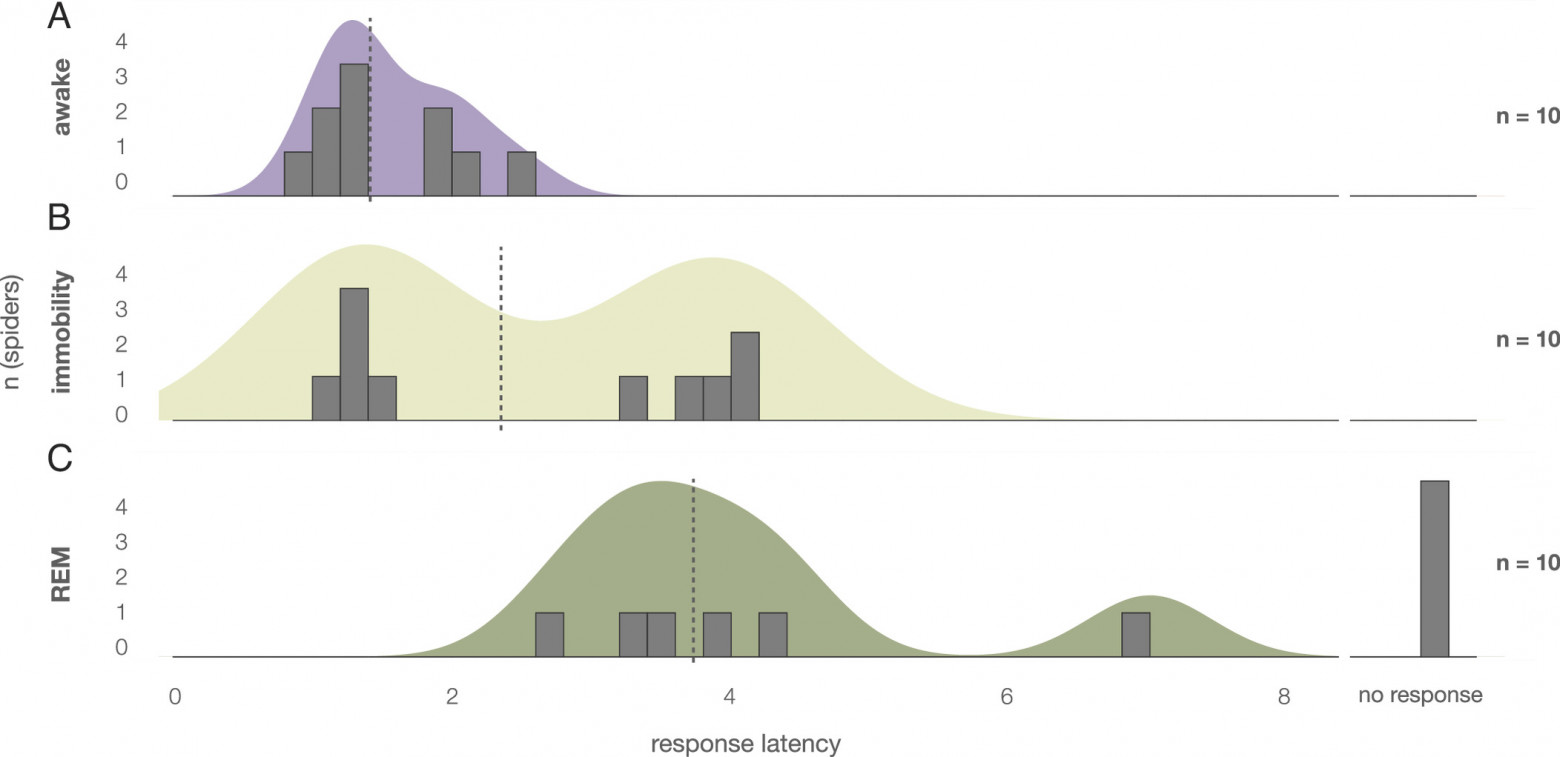
Изображение №3
Функциональное состояние организма кардинально влияло на время реакции на звуковой стимул, в то время как половая принадлежность значения не имела. Самый короткий латентный период фиксировался при бодрствовании (1.69 с), промежуточный — в состоянии ночного покоя (2.71 с), а максимальный — во время REM-подобных эпизодов (4.27 с) (видео №2). Статистический анализ подтвердил значимые различия между бодрствованием и покоем, а также между бодрствованием и REM-фазой. При сравнении REM-фазы с обычным покоем наблюдалась явная тенденция к росту латентного периода. Качественно это выражалось в том, что на звуковой сигнал реагировали абсолютно все бодрствующие или находящиеся в обычном покое пауки (10 из 10), тогда как в фазе REM-подобного сна на раздражитель ответили лишь 6 особей из 10. Проигнорировавшие стимул пауки мгновенно реагировали при повторном тестировании в бодрствующем состоянии, доказывая, что отсутствие реакции связано именно со спецификой сонного торможения, а не с сенсорными дефектами.
Видео №2
Нарушение сна: свидетельства гомеостатического восстановления
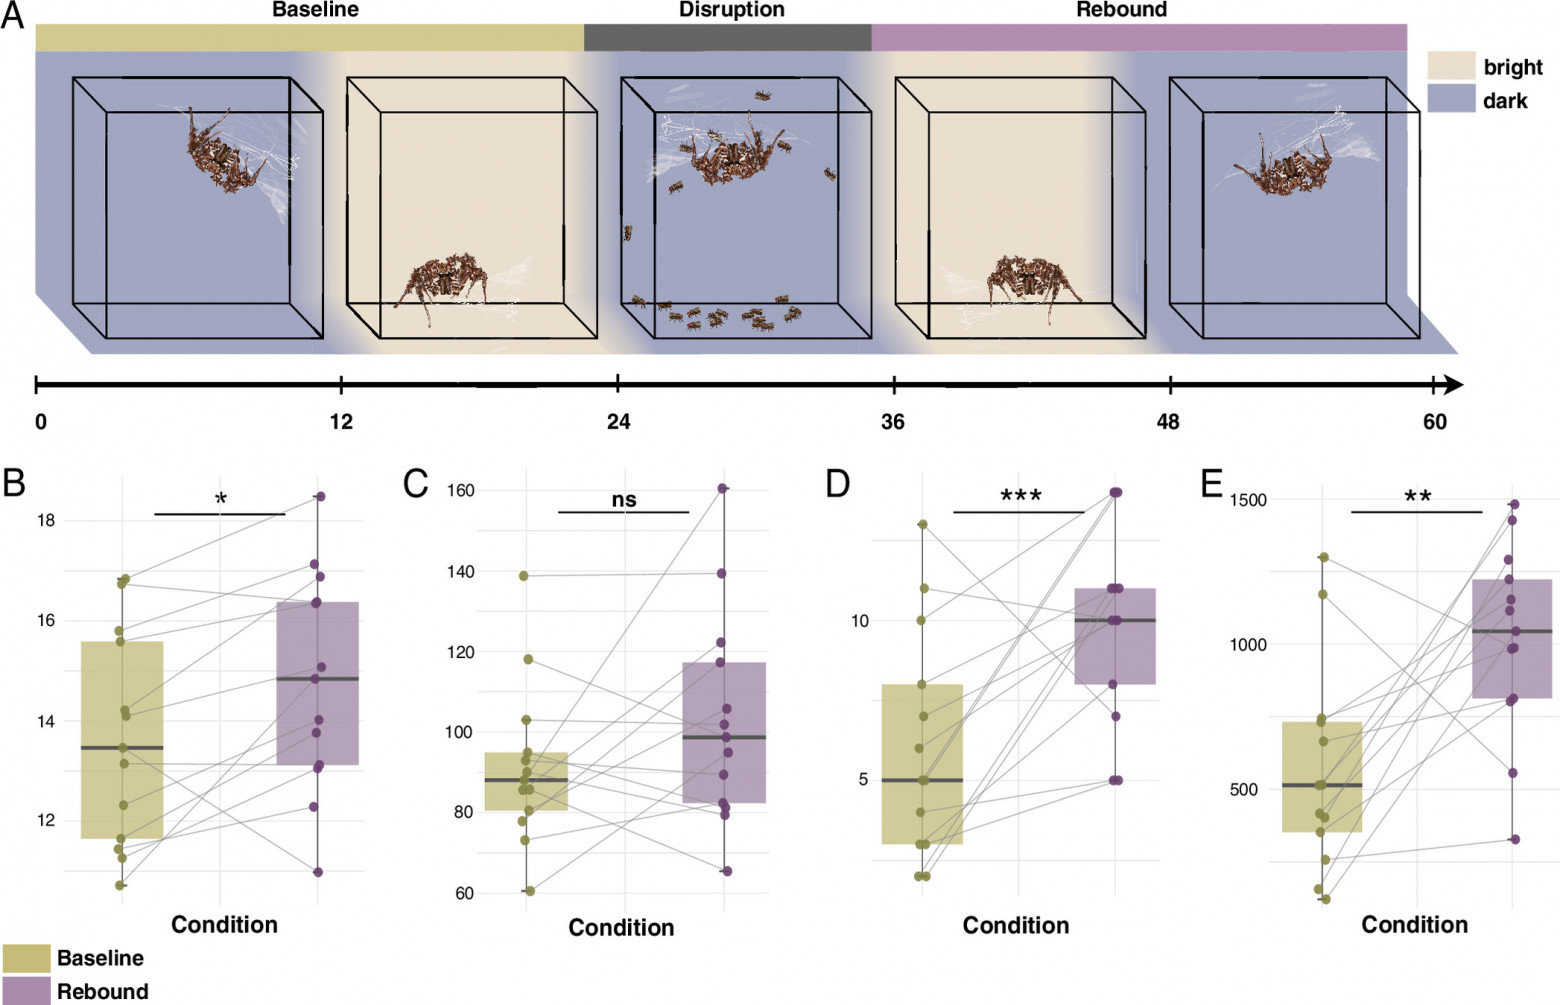
Изображение №4
Для проверки гомеостатического ответа пауков подвергли принудительной депривации сна в течение ночи, систематически тревожа их с помощью плодовых мушек Drosophila melanogaster (видео №3). Затем ученые замерили поведенческие показатели в восстановительный период, сопоставив их с базовыми значениями.
Видео №3
Суммарная продолжительность сна в фазу восстановления статистически значимо возросла по сравнению с нормой (с 13.64 до 14.80 часов; прирост на 8.5%; 4B). И хотя длительность единичного REM-подобного эпизода не изменилась (около 93 с в норме против 101 с после депривации; 4C), частота их возникновения подскочила на 64.6% (с 6.1 до 10 эпизодов за ночь; 4D). Как следствие, общее время REM-подобной активности увеличилось почти на 80% (с 9.4 до 16.9 минут; 4E). В процентном отношении доля REM-фазы ко всему времени сна выросла с 1.18% до 1.95%. В контрольной группе без внешних вмешательств продолжительность ночного сна оставалась стабильной на протяжении трех ночей (около 12 часов).
Полученные данные убедительно доказывают, что пауки (в частности, вид Portia fimbriata) обладают полноценными фазами сна, включая аналог быстрого сна.
С деталями эксперимента можно ознакомиться в оригинальном отчете исследователей.
Эпилог
В разобранной научной работе биологи детально исследовали феномен сна у пауков-скакунчиков Portia fimbriata с целью поиска эмпирических доказательств существования у них фазы, подобной REM-сну.
Сон — фундаментальный элемент жизнедеятельности подавляющего большинства земных организмов, необходимый для восстановления гомеостаза, регенерации нервной ткани и обработки информации. Одной из интригующих загадок сна остаются сновидения. Ранее считалось, что сны доступны лишь человеку и избранным группам позвоночных. И хотя список видов, способных видеть сны, постоянно расширяется, наука незаслуженно обходит стороной беспозвоночных из-за колоссальной сложности подобных исследований.
Авторы рассмотренного проекта опирались на скудные предшествующие изыскания в области сомнологии беспозвоночных, выведя их на качественно новый уровень наблюдения.
Наблюдая за десятью особями Portia fimbriata, ученые зафиксировали две четко обособленные стадии сна, одна из которых по ряду признаков напоминает фазу быстрых движений глаз, мышечных подергиваний и ярких образов у людей. Конечно, это не доказывает наличие осознанных сновидений у пауков, но демонстрирует, что их сон устроен значительно сложнее, чем предполагалось ранее.
Эти открытия открывают захватывающие перспективы для этологии, нейробиологии и хронобиологии. Изучая сон у широкого спектра филогенетических ветвей, ученые надеются обнаружить универсальные паттерны и эволюционные корни этой функции. В перспективе планируется исследовать организмы с принципиально иным устройством нервной системы, чтобы понять, возникали ли механизмы сна независимо в разных ветвях эволюции. Не менее важной задачей остается поиск связи между сном и когнитивными функциями у членистоногих. Кроме того, ученых беспокоит влияние антропогенных факторов — в частности, светового загрязнения мегаполисов — на циркадные ритмы паукообразных.
Немного рекламы
Благодарим за то, что остаетесь с нами. Хотите больше глубоких разборов и качественного технического контента? Поддержите наш проект, заказав облачные VPS для разработчиков от $4.99 — это уникальная линейка entry-level серверов, созданная специально для ваших задач: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны конфигурации с RAID1/RAID10, до 24 ядер и 40GB RAM).
Ищете серверы Dell R730xd по цене вдвое ниже рынка в дата-центре Maincubes Tier IV (Амстердам)? Только у нас: 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — от $99! Узнайте, Как построить корпоративную инфраструктуру на базе серверов Dell R730xd с процессорами Е5-2650 v4 стоимостью 9000 евро за сущие копейки?
Похожие статьи
 Коллективный разум и способность к самообучению у одноклеточных организмов
 Математика дейтинга: рассчитай свою ликвидность в интерактивном калькуляторе Тиндера
 Судебные зарисовки в США и Великобритании и тайна адвоката Чарли Мэнсона
 Где грань между искусственным интеллектом и человеком?
 Подъемная сила крыла. Часть 2: парадокс д’Аламбера и модель Жуковского
 Без тёмной энергии: уравнения Эйнштейна объясняют структуру Вселенной
 Вайб-обучение
 Эффективный менеджмент знаний: подборка книг о том, как монетизировать опыт персонала