Козодой: аэродинамика компромисса
С глубокой древности люди наблюдали за птицами, без усилий парящими в небе, с восхищением и толикой зависти. Поэты воспевали крылатых странников в стихах, художники стремились запечатлеть их грацию и мощь, а исследователи пытались понять, как и почему птицы способны летать. Научный подход к изучению птичьего полёта не дал человеку возможности взлететь буквально, зато привёл к созданию машин, которые на это способны. Развитие технологий и научных методов позволило рассматривать полёт птиц куда подробнее — не только с позиций орнитологии, но и метеорологии, навигации, аэродинамики, биомеханики и даже бионики. Учёные из Лундского университета (Лунд, Швеция) изучили полёт обыкновенного козодоя и обнаружили в нём весьма необычные черты. Чем же примечательна техника полёта козодоя и как эти знания можно применить в авиации и робототехнике? Ответы на эти вопросы содержатся в докладе исследователей.
Основа исследования
Умение активно летать открыло перед птицами новые экологические ниши и дало им возможность освоить самые разные модели поведения — от питания нектаром в режиме зависания до дальних миграций. Поэтому у разных видов наблюдается заметное разнообразие форм крыльев и стилей полёта. Сочетание формы крыла (морфологии) и характера его движений (кинематики) определяет аэродинамические характеристики — величину, направление и энергетические затраты создаваемой подъёмной и движущей силы. То, как взаимодействие этих факторов направляет эволюцию межвидовых различий, по-прежнему остаётся одной из ключевых нерешённых задач биологии. Различия в удельной нагрузке на крыло (отношении массы тела к площади крыльев) и в форме крыла (например, в соотношении длины дистальной части крыла и размаха, в удлинении — отношении длины крыла к хорде, а также в распределении хорды по размаху) нередко коррелируют с особенностями полёта у разных видов. Тем не менее у каждого вида есть собственные задачи, продиктованные образом жизни, и это часто вынуждает искать компромиссные решения. Выясняя, как отдельные виды справляются с такими противоречивыми требованиями, учёные получают возможность оценить относительную «цену» тех или иных эволюционных решений.
Аэродинамические и механические затраты при полёте складываются из трёх составляющих мощности: на преодоление паразитного, профильного и индуктивного сопротивления. Первые две связаны соответственно с характеристиками тела и крыльев и преобладают на высоких скоростях, тогда как мощность, уходящая на индуктивное сопротивление, связана с созданием подъёмной силы и играет главную роль на малых скоростях. Профильное и индуктивное сопротивление, кроме прочего, зависят от размера и формы крыльев. У животных, летающих при помощи взмахов, параметры (размер и форма), минимизирующие профильное сопротивление, не всегда совпадают с теми, что минимизируют индуктивное. Следовательно, животным, приспособленным главным образом к медленному полёту, нужны крылья иной формы, чем тем, что адаптированы к быстрому. Что же касается видов, которым по экологическим причинам приходится летать в широком диапазоне скоростей и режимов, то у них можно ожидать не только компромиссов в морфологии крыла, но и использования разных кинематических стратегий для оптимизации аэродинамики. Изучение таких видов помогает лучше понять адаптации и ограничения, свойственные полёту животных. В этой работе представлены результаты исследования одного из них — обыкновенного козодоя.
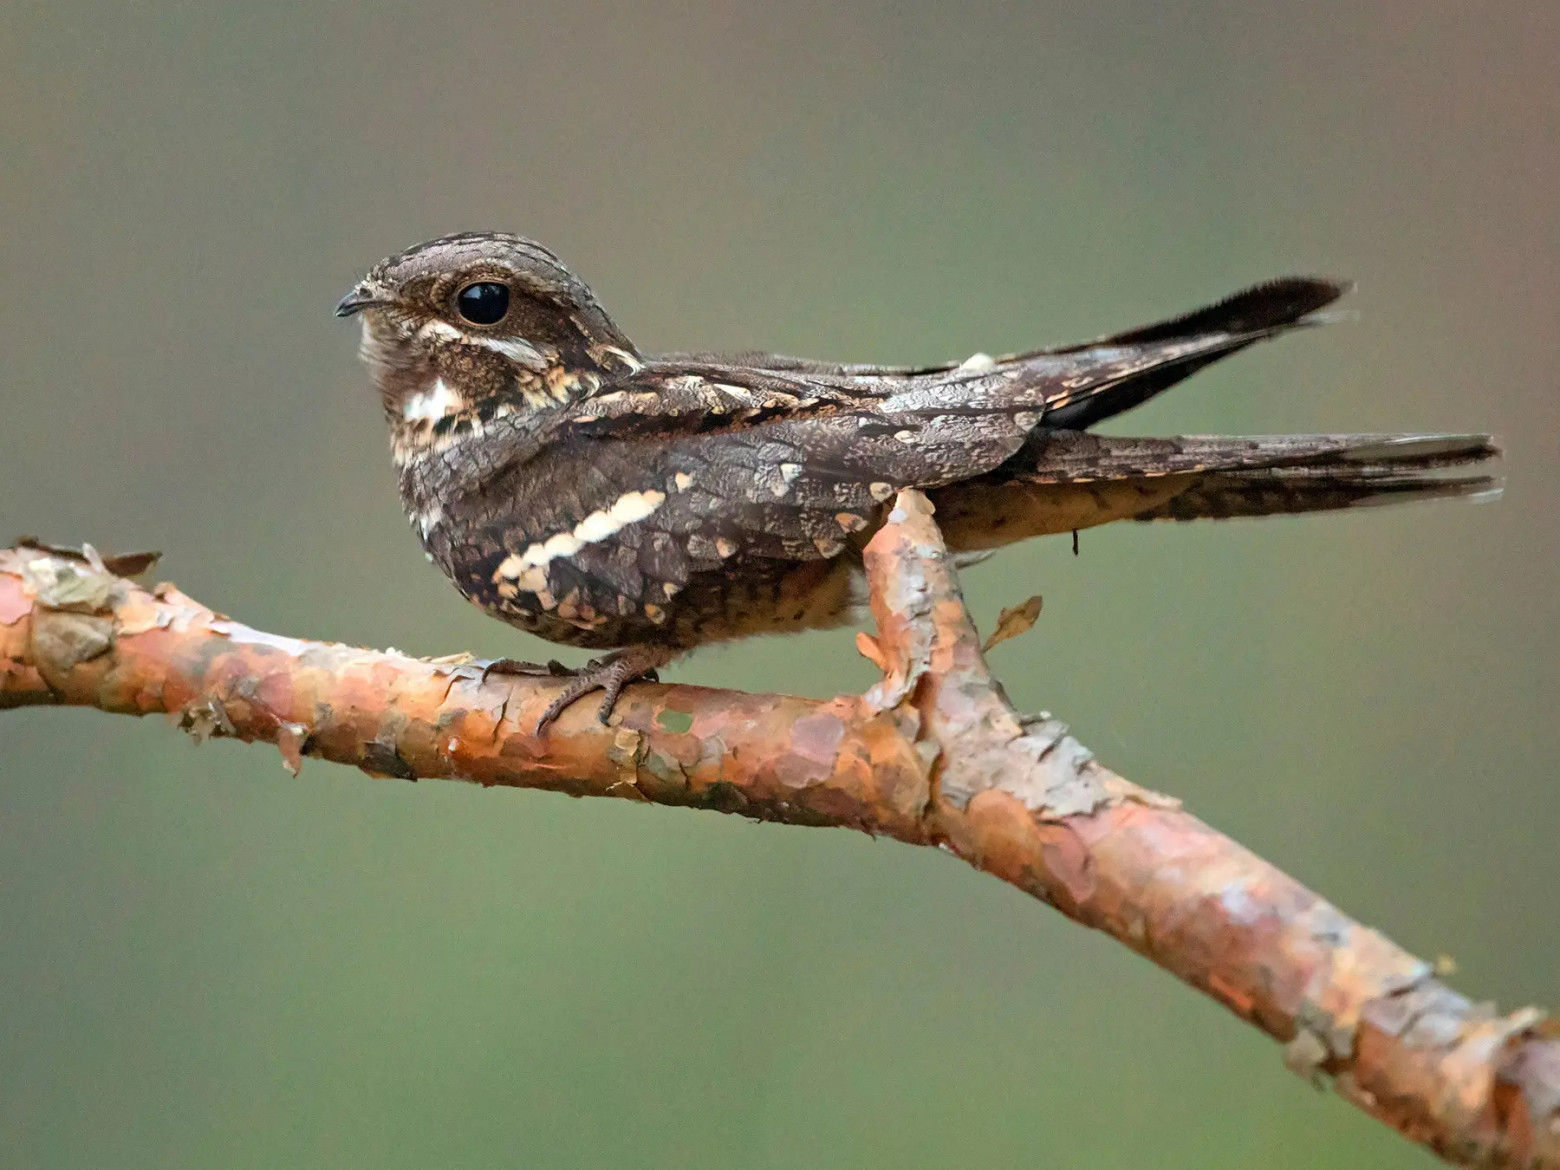
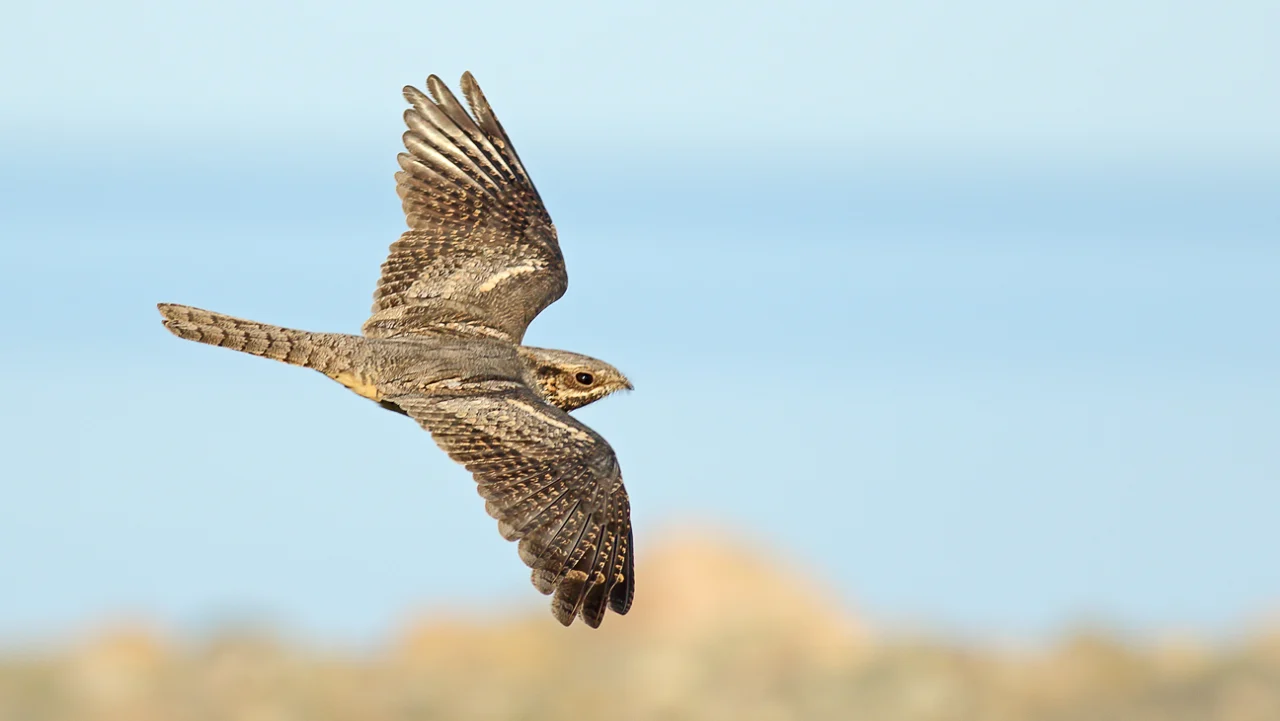
Обыкновенный козодой (Caprimulgus europaeus) — загадочная птица, выделяющаяся сочетанием размера и формы крыльев, а также своеобразием полёта. Это перелётный вид, совершающий дальние миграции, ведущий сумеречный образ жизни и питающийся насекомыми, которых он ловит на лету. Днём козодой неподвижно отдыхает — как правило, прямо на земле, где и устраивает гнездо, — а с наступлением сумерек отправляется на охоту. Такой уклад требует умения летать в широком диапазоне скоростей: медленно — во время охоты (птица способна даже зависать в безветрии) и быстро — во время миграционных перелётов. Поскольку для этих двух режимов оптимальны разные формы крыльев и разный характер взмахов, а крылья козодоя к тому же имеют весьма необычное строение, этот вид представляет значительный интерес для аэродинамических исследований.
Для птицы, способной лететь очень медленно и подолгу зависать, козодой довольно тяжёл (71 ± 11,7 г). При такой массе его крылья длинные, крупные и достаточно узкие: удлинение (отношение размаха к средней хорде) составляет 7,5 (у птиц этот показатель обычно лежит в пределах от 4 до 15). В отличие от большинства птиц с относительно высоким удлинением крыльев, у козодоя их кончики сравнительно широкие, и этим он также непохож на многих мастеров зависания, например колибри. С учётом размеров козодоев можно предположить, что широкие кончики крыльев — это приспособление, помогающее удерживать вес тела при медленном полёте: они увеличивают хорду той части крыла, которая движется в воздухе быстрее всего. Однако подобные кончики могут повышать профильное сопротивление (обусловленное силами трения), а также индуктивное сопротивление из-за неравномерности нисходящего потока, что снижает эффективность крыла на высоких скоростях. В этой работе исследователи выясняли, как адаптации к медленному полёту сказываются на эффективности движения птицы на крейсерской скорости.
Чтобы определить, как форма крыла и кинематика взмахов влияют на аэродинамику, учёные измерили вихри в следе за птицей и вычислили мощность, необходимую для полёта в разных скоростных режимах. По данным о вихревом следе они рассчитали аэродинамическую мощность и сопоставили её со значениями, предсказанными моделью машущего полёта. Помимо этого, был вычислен ряд показателей эффективности, позволяющих оценить, как с изменением скорости меняется процесс создания аэродинамической силы и как соответственно перестраивается трёхмерная кинематика движений.
Результаты исследования
Учёные собрали данные по трём особям. Число наблюдений (полётов) для каждой из них составляло от 78 до 212 — в зависимости от анализируемой переменной. Структура спутного следа (вихрей) менялась в исследованном диапазоне скоростей (2,6–11 м/с), причём наиболее заметные отличия проявлялись при сравнении минимальной скорости со всеми остальными.
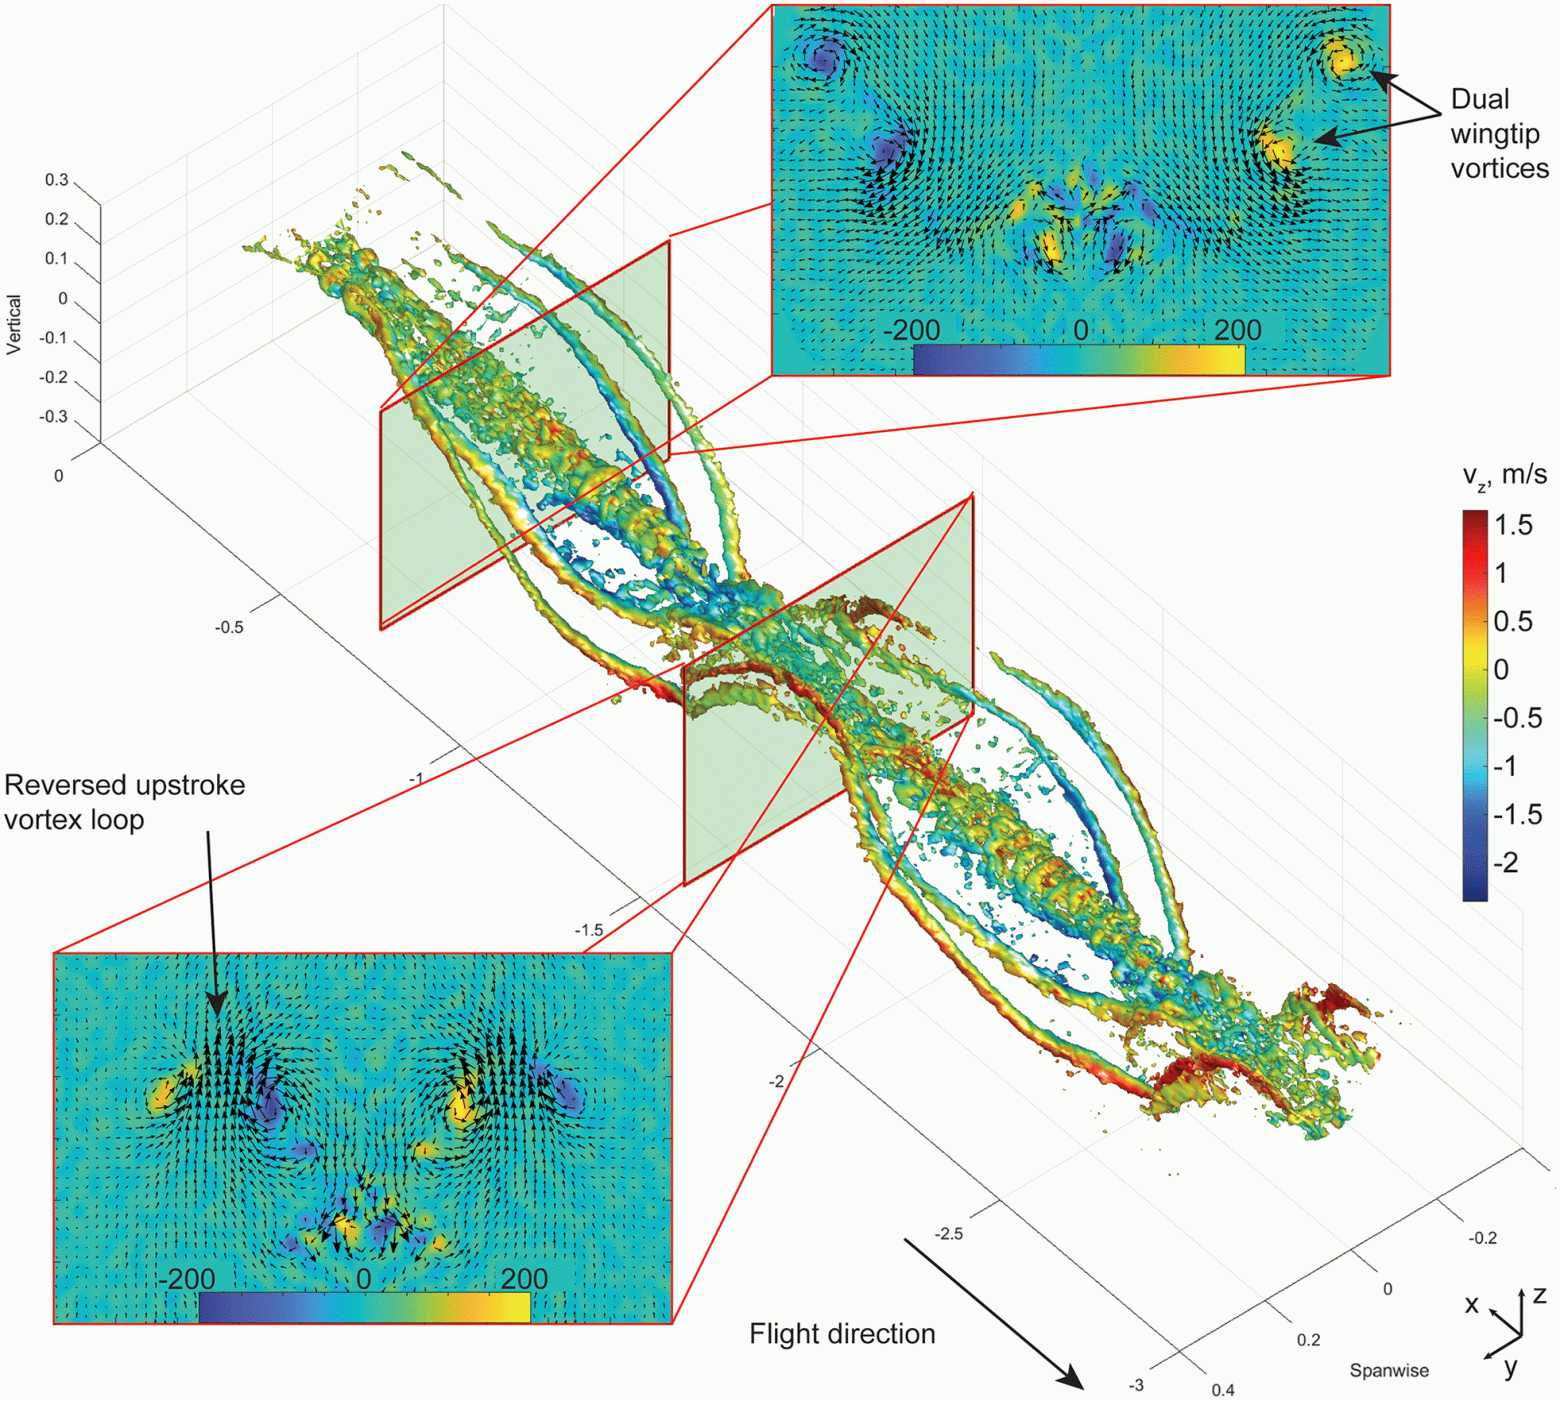
Изображение №1
На крейсерских скоростях (то есть начиная со скорости, соответствующей минимальной затрачиваемой мощности, и выше) в спутном следе наблюдались волнообразные вихри — характерный признак машущего полёта, — однако здесь обнаружились два необычных элемента. Во-первых, были выявлены двойные концевые вихри, возникающие при движении крыла вниз (взмахе вниз). Во-вторых, у внешних участков крыльев в конце взмаха вверх формировались обратные вихревые петли (диаграмма выше). Эти петли были связаны с восходящим потоком воздуха и имели такой наклон, который говорит о создании крылом тяги (диаграмма выше и 2a).
При минимальной скорости полёта доминировал один концевой вихрь. Порой рядом возникали более слабые вихри, которые зачастую смещались под действием индуцированного потока. На этой скорости структура следа при взмахе вверх была сложнее, чем при взмахе вниз. Во время взмаха вверх внутренняя часть крыла двигалась вперёд относительно неподвижного воздуха, а дистальная часть (кистевой отдел) — назад, поскольку скорость её движения при взмахе превышала скорость поступательного полёта. В итоге след от взмаха вверх взаимодействовал со следом от предыдущего взмаха вниз, а при очередном взмахе вниз крыло проходило сквозь след, оставшийся от предыдущего взмаха вверх. Это существенно затрудняло интерпретацию структуры следа. Тем не менее во второй половине взмаха вверх внешняя часть крыла отчётливо формировала вихревую петлю, свидетельствующую о создании тяги (о чём говорит и наличие индуцированного потока, направленного назад). В этот же момент в кинематике крыла проявлялось характерное «веерообразное» движение с наклоном передней кромки вниз. Соответственно, на протяжении большей части взмаха вверх от внешней части крыла отходил поток, направленный назад, что тоже указывает на генерацию тяги.
Кинематика говорила о наличии циркуляции противоположных знаков во внутренней и внешней частях крыла при движении вверх. Кроме того, на видеозаписях было заметно, что в средней части крыла между второстепенными маховыми перьями образуется просвет. Это позволяло ожидать появления вертикально ориентированного вихря в данной области размаха, однако в спутном потоке отчётливого вертикального вихря обнаружено не было. Тем не менее поток от внутренней части крыла при движении вверх отличался высокой сложностью и изменчивостью (вероятно, из-за больших углов атаки), а на видео было видно, что кроющие перья приподнимаются над поверхностью крыла — признак низкого давления и, возможно, отрыва потока со слабой циркуляцией и высоким лобовым сопротивлением.
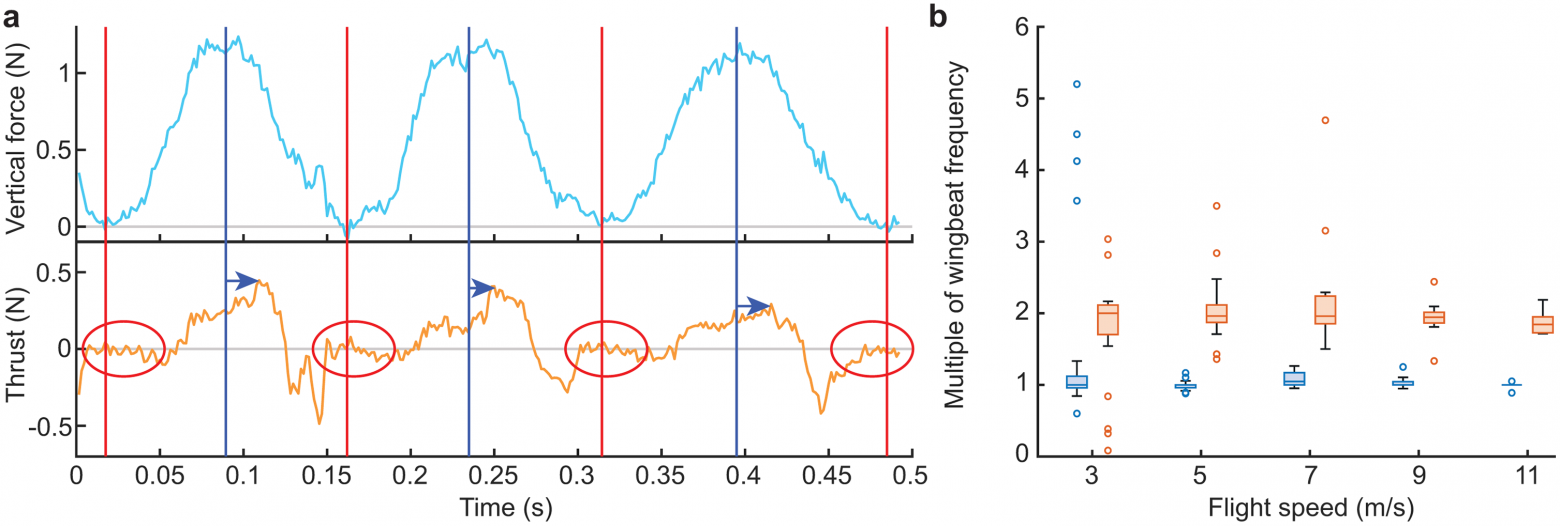
Изображение №2
На всех скоростях полёта основная часть вертикальной силы (FV) создавалась при движении крыла вниз (опускании), при этом пик тяги (T) достигался позже, чем пик вертикальной силы (2a). Минимум вертикальной силы за один взмах приходился на фазу движения крыла вверх (подъёма) и совпадал со вторым пиком тяги (или минимумом отрицательной тяги) (2a). По результатам фурье-анализа тяги во времени, второй по величине пик в среднем составлял ~45% от мощности основного (наибольшего) пика и при любых скоростях соответствовал удвоенной частоте основного пика (то есть удвоенной частоте взмахов) (2b). Таким образом, в течение одного взмаха тяга зачастую имеет два пика.
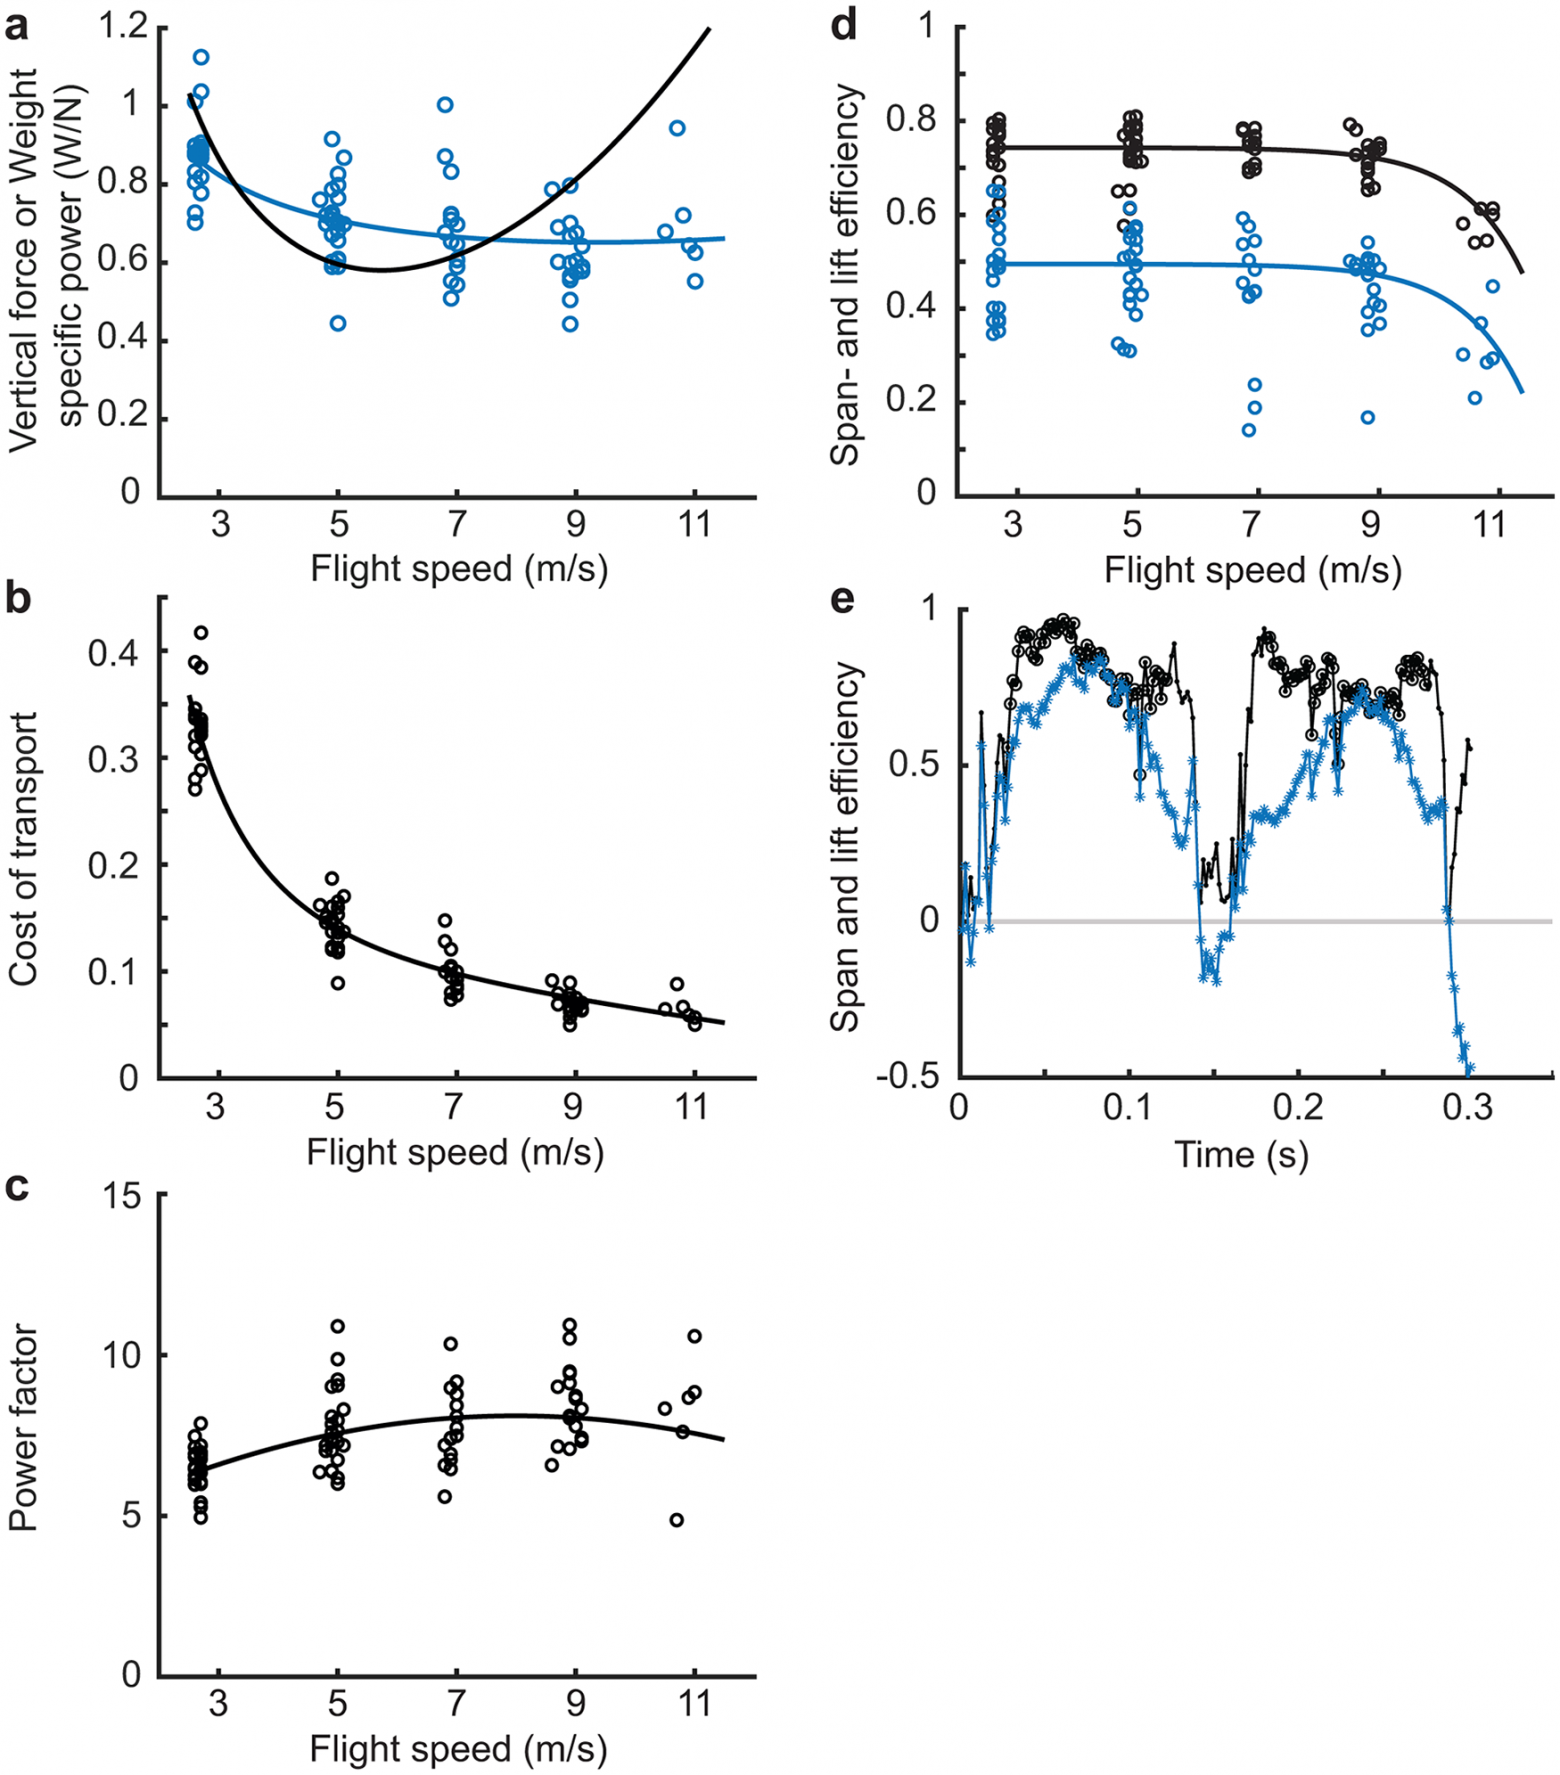
Мощность, нормированная по вертикальной силе (FV), лежала в диапазоне от 0,44 до 1,13 Вт/Н и менялась в зависимости от скорости по U-образной кривой (P/FV = 0.90/U∞ + 3.92·10−5U3∞ + 0.524), а минимальное значение (0,65 Вт/Н) достигалось при скорости около 9,3 м/с (3a). В сравнении с теоретической моделью эта кривая имеет более пологую U-образную форму: как на самых низких, так и на самых высоких скоростях фактические значения мощности оказались ниже расчётных (3a).
Изображение №3
Оба показателя эффективности — стоимость перемещения (COT, от cost of transport) и коэффициент мощности (PF, от power factor) — демонстрировали рост эффективности с увеличением скорости (COT = 1.78/U2∞ + 2.76·10−4U2∞ + 0.0750; 3b; PF = 4.24 + 0.969U – 0.0606U2∞; 3c), при этом максимум достигался при скорости около 8 м/с. В то же время коэффициент эффективности размаха крыла (ei) в фазе опускания в среднем составил 0,72 и снижался по мере роста скорости (ei = 0.743 – 2.72·10−6eU∞; 3d). Эффективность создания вертикальной силы (eiFV) оказалась ниже (0,45) и также падала с ростом скорости (eiFV = 0.495 – 2.79·10−6eU∞; 3d). В течение одной фазы опускания коэффициент эффективности размаха оставался относительно постоянным, а эффективность создания вертикальной силы менялась, достигая пика в середине этой фазы (3e).
Изображение №4
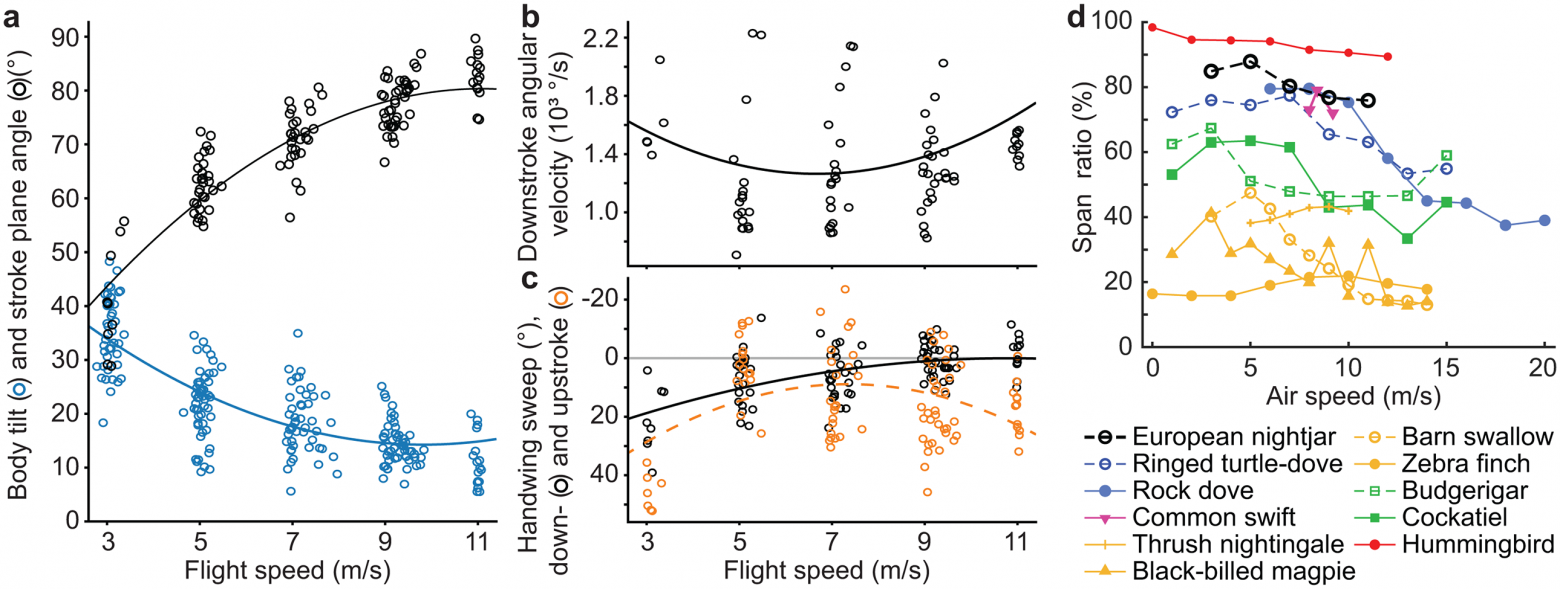
Баланс между тягой и весовой нагрузкой при смене скорости полёта можно регулировать несколькими способами. Кинематический анализ показал, что при изменении скорости козодои корректируют как наклон тела, так и угол плоскости взмаха. С уменьшением скорости создавать подъёмную силу, уравновешивающую вес птицы, становится труднее: для этого взмах должен быть направлен более горизонтально. Поэтому птицы увеличивают угол наклона тела (угол наклона тела = 55.1 – 8.29U∞ + 0.422U2∞, 4a). Это ведёт к росту угла атаки самого тела и способствует изменению наклона плоскости взмаха. На низких скоростях плоскость взмаха расположена менее вертикально, чем на высоких (угол плоскости взмаха = 11.3 + 12.5U∞ – 0.562U2∞, 4a), и этот параметр меняется заметнее, чем угол наклона тела (4a). Кроме того, исследователи обнаружили два изменения, указывающие на усиленную компенсацию веса на малых скоростях: увеличение угла наклона хвоста (угол наклона хвоста = 25.1 – 6.31U∞ + 0,356U2∞) и увеличение угла его раскрытия (угол раскрытия хвоста = 104 – 5.23U∞).
Усилия по созданию аэродинамических сил связаны со скоростью взмахов крыла. При переходе от минимальных скоростей полёта к максимальным амплитуда взмахов растёт (~37%) (амплитуда угла взмаха = 69.2 + 3.71U∞), а частота снижается (~16%) (частота взмахов крыльев = 8.24 – 0.159U∞), тогда как доля времени, приходящаяся на движение крыла вниз (фазу опускания), остаётся относительно постоянной (доля фазы опускания = 0.527 – 0.00308U∞). В совокупности это приводит к тому, что скорость взмахов в исследованном диапазоне меняется по U-образной кривой (средняя угловая скорость при движении крыла вниз = 2235 – 291U∞ + 21.8U2∞; 4b) с минимумом около 6,7 м/с.
Коэффициент размаха показывает, насколько сильно крыло складывается при взмахе вверх по сравнению со взмахом вниз. Он был высоким (~80%) и слабо зависел от скорости, демонстрируя небольшую выпуклую зависимость (коэффициент размаха = 0.925 – 0,0184U∞; 4d). У козодоев этот коэффициент регулировался в основном за счёт складывания проксимальной части крыла («плеча»), тогда как отклонение дистальной части («кисти») при взмахе вверх было незначительным (при опускании крыла = 54.1 + 6.63U∞ – 0.306U2∞; при подъёме крыла = 24.8 + 15.3U∞ – 1.04U2∞; 4c).
Чтобы подробнее разобраться в нюансах исследования, рекомендую обратиться к докладу учёных и дополнительным материалам к нему.
Эпилог
В рассмотренной нами сегодня работе исследователи сосредоточились на аэродинамике полёта европейского козодоя.
Европейский козодой (Caprimulgus europaeus) — ночной охотник, ежегодно совершающий грандиозное путешествие между Европой и югом Африки. Другая его отличительная черта — способ охоты: насекомых он ловит буквально на лету. В результате сталкиваются две противоположные лётные концепции: быстрый перелёт на большие расстояния и медленный, но маневренный полёт во время охоты.
Авторы выяснили, что эти противоречивые требования приводят к неожиданному компромиссу. Хотя строение козодоя приспособлено к длительным миграциям, его крылья не идеальны для эффективного полёта на высоких скоростях.
Для изучения особенностей полёта козодоев учёные провели эксперименты в аэродинамической трубе: они фиксировали движения птиц на разных скоростях и анализировали воздушные потоки за их крыльями.
Оказалось, что широкие кончики крыльев, которые, вероятно, помогают птице маневрировать при медленном полёте, мешают ей при росте скорости. На высоких скоростях крылья козодоя создают подъёмную силу менее эффективно. Эти результаты ставят под сомнение распространённое мнение, что птицы, преодолевающие огромные расстояния, обязаны иметь крылья, оптимизированные прежде всего для максимально эффективного дальнего перелёта.
Исследователи обнаружили и ещё одну удивительную особенность. Даже на подъёме крыльев — в фазе, называемой «восходящим взмахом», — птица продолжает создавать тягу, то есть силу, толкающую её вперёд. Это необычно, поскольку столь активную работу крыльев при движении вверх ранее связывали главным образом с механикой полёта летучих мышей и насекомых, но не птиц. Данное открытие позволяет предположить, что животные с совершенно разной эволюционной историей могли выработать схожие аэродинамические решения проблем, связанных с полётом.
Полученные результаты расширяют представление о том, как эволюция формирует организмы, использующие одни и те же части тела для разных задач. Вместо того чтобы создавать крылья, идеально подходящие для единственной цели, эволюция может отдавать предпочтение конструкциям, которые находят баланс между несколькими противоречивыми потребностями. В случае козодоя это означает сочетание способности к межконтинентальным миграциям с маневренностью, необходимой для охоты на насекомых на малых скоростях.
Понимание таких компромиссов может способствовать совершенствованию авиационных технологий — в частности, разработке беспилотников и других роботизированных летательных аппаратов с машущими крыльями. Как и птицы, подобные аппараты могут сталкиваться с механическими ограничениями, мешающими сильно складывать крылья при каждом взмахе. Изучение того, как козодои создают тягу при движении крыла вверх, способно помочь инженерам найти более эффективные способы перемещения в воздухе.
Немного рекламы
Спасибо, что остаётесь с нами. Вам нравятся наши статьи? Хотите видеть больше интересных материалов? Поддержите нас, оформив заказ или порекомендовав нас знакомым: облачные VPS для разработчиков от $4.99, уникальный аналог серверов начального уровня, придуманный нами специально для Вас: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны варианты с RAID1 и RAID10, до 24 ядер и до 40GB DDR4).
Dell R730xd в 2 раза дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — от $99! Читайте о том, как построить инфраструктуру корпоративного класса с применением серверов Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки?
Похожие статьи
 «Универсальная вакцина защитила мышей от множества патогенов»: фантазия или шанс для будущих поколений
 Можно ли заглянуть в «мозг» нейросети и понять, о чём она думает?
 Зачем на взлётно-посадочных полосах делают поперечные борозды: что говорится в отчётах NASA
 Факс отмечает 183-летие: история изобретения длиной почти в два века
 Ревизия космоса: как чёрные дыры оказались мусоросжигательными заводами Вселенной и почему Планковская длина — всего лишь миф
 Почему математиков поразило доказательство квазигипотезы Римана, представленное OpenAI
 Хроники цифровых фабрик: роботы могут почти всё, кроме того, что от них действительно ждут
 Как ведёт себя броуновская частица, пока за ней никто не наблюдает?