Активация блуждающего нерва помогает быстрее осваивать новые навыки
На протяжении всей жизни человеку регулярно приходится овладевать новыми умениями. Данный процесс может протекать как спонтанно, так и целенаправленно. Освоение инновационных технологий, смена профессиональной деятельности, изучение иностранных языков или освоение хореографии — все эти задачи требуют ментальных усилий для надежного закрепления информации и формирования стойких навыков. С годами эта способность неизбежно замедляется, а эффективность усвоения материала падает даже при многократных повторениях. Сегодня существует масса коммерческих средств, от специализированных биодобавок до практик осознанности, призванных улучшить когнитивные способности и работу мозга. К сожалению, большинство подобных методов базируются исключительно на эффекте плацебо либо вовсе не имеют доказанной эффективности. Исследователи из Университета Тохоку в Японии решили применить принципиально иной, более прямой подход. В ходе научной работы они выяснили, что искусственная стимуляция блуждающего нерва существенно ускоряет консолидацию моторных навыков у подопытных мышей. Каким образом проводилось это воздействие, насколько сильно оно влияло на процесс обучения и какие перспективы открывают эти выводы для медицины? Подробный разбор представлен в официальном отчете исследователей.
Основа исследования
Химический состав, ионный баланс и молекулярный микроклимат головного мозга играют фундаментальную роль в построении и стабильной работе нейронных сетей. В зависимости от локальных условий одни и те же входящие сигналы могут генерировать совершенно разные результаты, а вероятность запуска синаптической пластичности (так называемая метапластичность) способна динамически меняться. Именно этим объясняется существенная вариативность в скорости обучения даже в абсолютно идентичных внешних обстоятельствах.
Подобная микросреда мозговых тканей, включая энергообеспечение и метаболическую поддержку, во многом формируется не самими нейронами, а глиальными клетками и разветвленной сосудистой сетью. Любые когнитивные изменения, связанные с памятью и обучением, сопровождаются перестройкой функционирования нейронных ансамблей под воздействием активности синапсов. В частности, запуск и стабилизация долговременной потенциации и депрессии (LTP и LTD) — процессов, признанных ключевыми клеточными механизмами памяти, — находятся под мощным влиянием локальных условий мозга. Как показывают предыдущие изыскания, кратковременная память опирается преимущественно на быстротечные синаптические сдвиги, в то время как долговременная требует синтеза белков, структурной перестройки и тесно сопряжена с энергетическим метаболизмом. Здесь важнейшую роль играет нейроваскулярное сопряжение, регулирующее доставку ресурсов для удовлетворения возросших метаболических запросов активных нейронов. Более того, накапливаются данные о том, что сосудистая динамика и обмен веществ претерпевают скоординированную адаптацию, напрямую подстраиваясь под задачи синаптической пластичности.
В последние годы научное сообщество все пристальнее изучает ось «мозг — тело» как важнейший регулятор центральной нервной деятельности. Доказано, что периферические интероцептивные сигналы способны напрямую влиять на поведение животных. Например, сигналы, поступающие от сердца и желудочно-кишечного тракта, прочно связывают с формированием тревожных и депрессивных состояний у грызунов. Подобные афферентные импульсы сходятся главным образом в блуждающем нерве и транслируются в его дорсальный комплекс (в частности, в ядро одиночного пути), откуда восходящим потоком расходятся по обширным зонам мозга. Этот путь активирует сразу несколько нейромодуляторных систем: холинергическую, норадренергическую, серотонинергическую и дофаминергическую. Подобная периферическая активность способна менять микроклимат в мозге, гибко настраивая работу нейронных цепей.
Электрическая стимуляция блуждающего нерва позволяет искусственно задействовать этот естественный канал связи между телом и центральными структурами. Такой метод (VNS) уже официально применяется для лечения ряда резистентных неврологических патологий, например тяжелых форм эпилепсии, однако точные биофизические механизмы его влияния на мозг до конца не изучены. Тем не менее, демонстрируя высокую терапевтическую ценность, VNS стала незаменимым инструментом для исследования периферической модуляции мозга. При этом вопрос о том, насколько связаны периферические сигналы при VNS с параллельными изменениями сосудистой активности, до недавнего времени оставался белым пятном.
В обсуждаемой работе ученые спроектировали специализированный миниатюрный манжетный электрод, позволяющий осуществлять хроническую стимуляцию блуждающего нерва у свободно перемещающихся мышей. Целью эксперимента было напрямую проверить, влияют ли эти искусственные сигналы на эффективность обучения и состояние мозговой ткани. В качестве модели использовались регулярные тренировки горизонтального оптокинетического рефлекса (HOKR), улучшающие зрительно-моторную координацию за счет синаптической пластичности в мозжечке. Хотя общеизвестно ключевое значение мозжечкового клочка (флоккулюса) в этом процессе, вопрос о том, где именно хранится долговременная память — локально или распределенно, — до сих пор дискутируется.
Авторы обнаружили, что подача VNS сразу после тренировок HOKR выборочно укрепляет долговременный эффект обучения на протяжении нескольких дней, подтверждая ключевую роль метода в консолидации памяти. Совмещение волоконной фотометрии in vivo и визуализации сосудистого русла показало, что единичная серия импульсов VNS запускает кратковременные изменения локального кровотока во флоккулюсе в виде сужения и расширения сосудов. Поскольку стимуляция повторялась каждые 40 секунд на протяжении 20 минут после тренировки, возникали регулярные «сосудистые осцилляции». Примечательно, что их амплитуда демонстрировала прямую сильную связь с успешностью долговременного закрепления навыка.
Полученные результаты позволяют предположить, что периферические сигналы от VNS вызывают перестройку цереброваскулярной динамики и сопутствующую метаболическую регуляцию, что и облегчает долгосрочное обучение. Хотя прямая причинно-следственная связь между самими колебаниями сосудов и ростом обучаемости в данной работе не была жестко доказана, исследование закладывает прочный фундаментальный базис для понимания того, как периферическое вмешательство модифицирует работу мозга, открывая пути для оптимизации терапевтических методик.
Результаты исследования
Платформа для стимуляции блуждающего нерва у мышей in vivo
Изображение №1
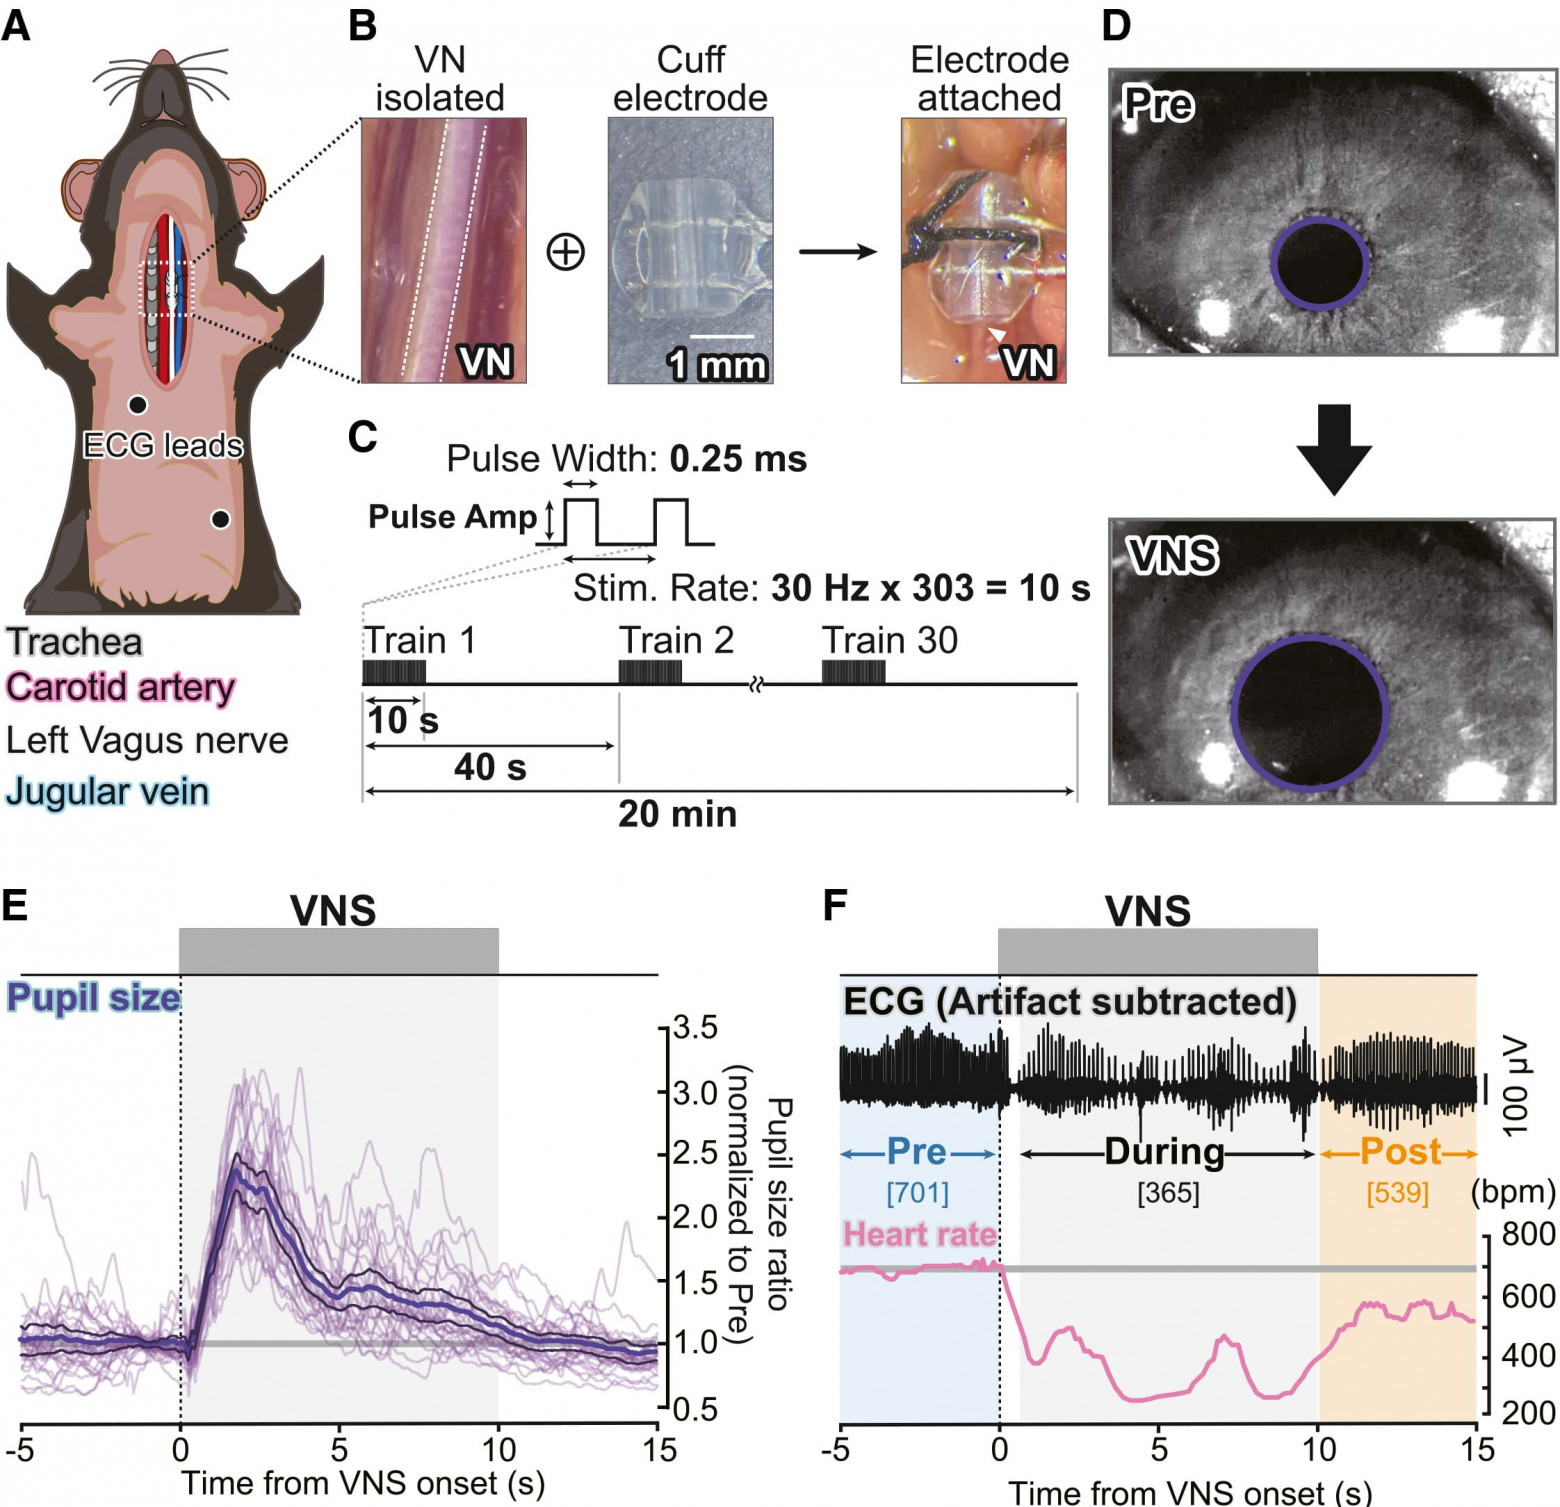
Для детального изучения роли VNS в регуляции функций ЦНС исследователи воздействовали на левый шейный отдел блуждающего нерва посредством оригинального манжетного электрода, обеспечивающего долговременную и стабильную стимуляцию у активных мышей (1A и 1B). Учитывая, что физиологический отклик на VNS сильно зависит от вида животного, конструкции датчика и параметров тока, ученые опирались на проверенные в предыдущих работах диапазоны с предварительной тонкой настройкой. Стимуляция подавалась сериями монофазных импульсов (сила тока 1.5 мА для базового протокола на 1C; длительность импульса 250 мкс) частотой 30 Гц на протяжении 10 секунд. Данный цикл повторялся 30 раз с сорокасекундными паузами (1C). Исправность имплантированных устройств подтверждалась объективными признаками активации нерва: мгновенным расширением зрачков и замедлением сердечного ритма.
Расширение зрачка традиционно служит надежным маркером успешного раздражения блуждающего нерва. В ходе экспериментов VNS неизменно провоцировала кратковременный мидриаз (1D и 1E). При серийной подаче стимулов нормализованная амплитуда расширения оставалась неизменной на протяжении всех подходов без статистически значимых различий между первыми и последними пробами. Анализ временных параметров показал, что латентный период пикового расширения (3.28 ± 0.38 с) и максимального ускорения (499.56 ± 21.24 мс) полностью совпадает с ранее опубликованными данными. Базовый размер зрачка после процедур также оставался стабильным, демонстрируя отсутствие нежелательного дрейфа показателей.
Параллельное урежение пульса (HR) также выступает классическим периферическим признаком срабатывания стимуляции. VNS вызывала быстрое падение ЧСС в момент подачи импульсов с сохранением некоторого остаточного эффекта после их окончания (1F). Абсолютные величины фиксировались в ударах в минуту, а относительные рассчитывались как отношение текущего пульса к фоновому до начала сеанса. Поскольку электрические артефакты неизбежно искажали ЭКГ-сигнал, для его очистки применялись специализированные алгоритмы фильтрации и детекции. Первая же серия импульсов приводила к резкому падению нормализованного пульса (с исходных 1.000 до 0.7085 ± 0.0410 во время стимуляции). При сравнении серий обнаружились статистически значимые различия между первыми и последними пятью попытками. В отличие от стабильного размера зрачков, исходный уровень сердечного ритма продемонстрировал заметный дрейф после многократных повторений VNS, причем базовая ЧСС имела выраженную отрицательную корреляцию с относительным показателем изменения пульса.
Стимуляция блуждающего нерва способствует улучшению результатов обучения в долгосрочной перспективе
Отработав методику стимуляции in vivo, ученые перешли к проверке ее влияния на процесс обучения. Учитывая, что корковая пластичность зависит от мощности VNS, а диаметр зрачка отражает уровень центральной нейромодуляции, исследователи сначала сопоставили эти параметры. Эскалация интенсивности тока закономерно вела к пропорциональному росту зрачка. Несмотря на гипотезы о том, что смена полярности электродов позволяет избирательно возбуждать афферентные либо эфферентные волокна, в эксперименте полярность не оказала существенного влияния на степень расширения зрачков. Опираясь на эти тесты и литературные источники, для дальнейших этапов были отобраны средняя и высокая мощности (0.6 и 1.5 мА) с краниальным расположением катода.
Изображение №2
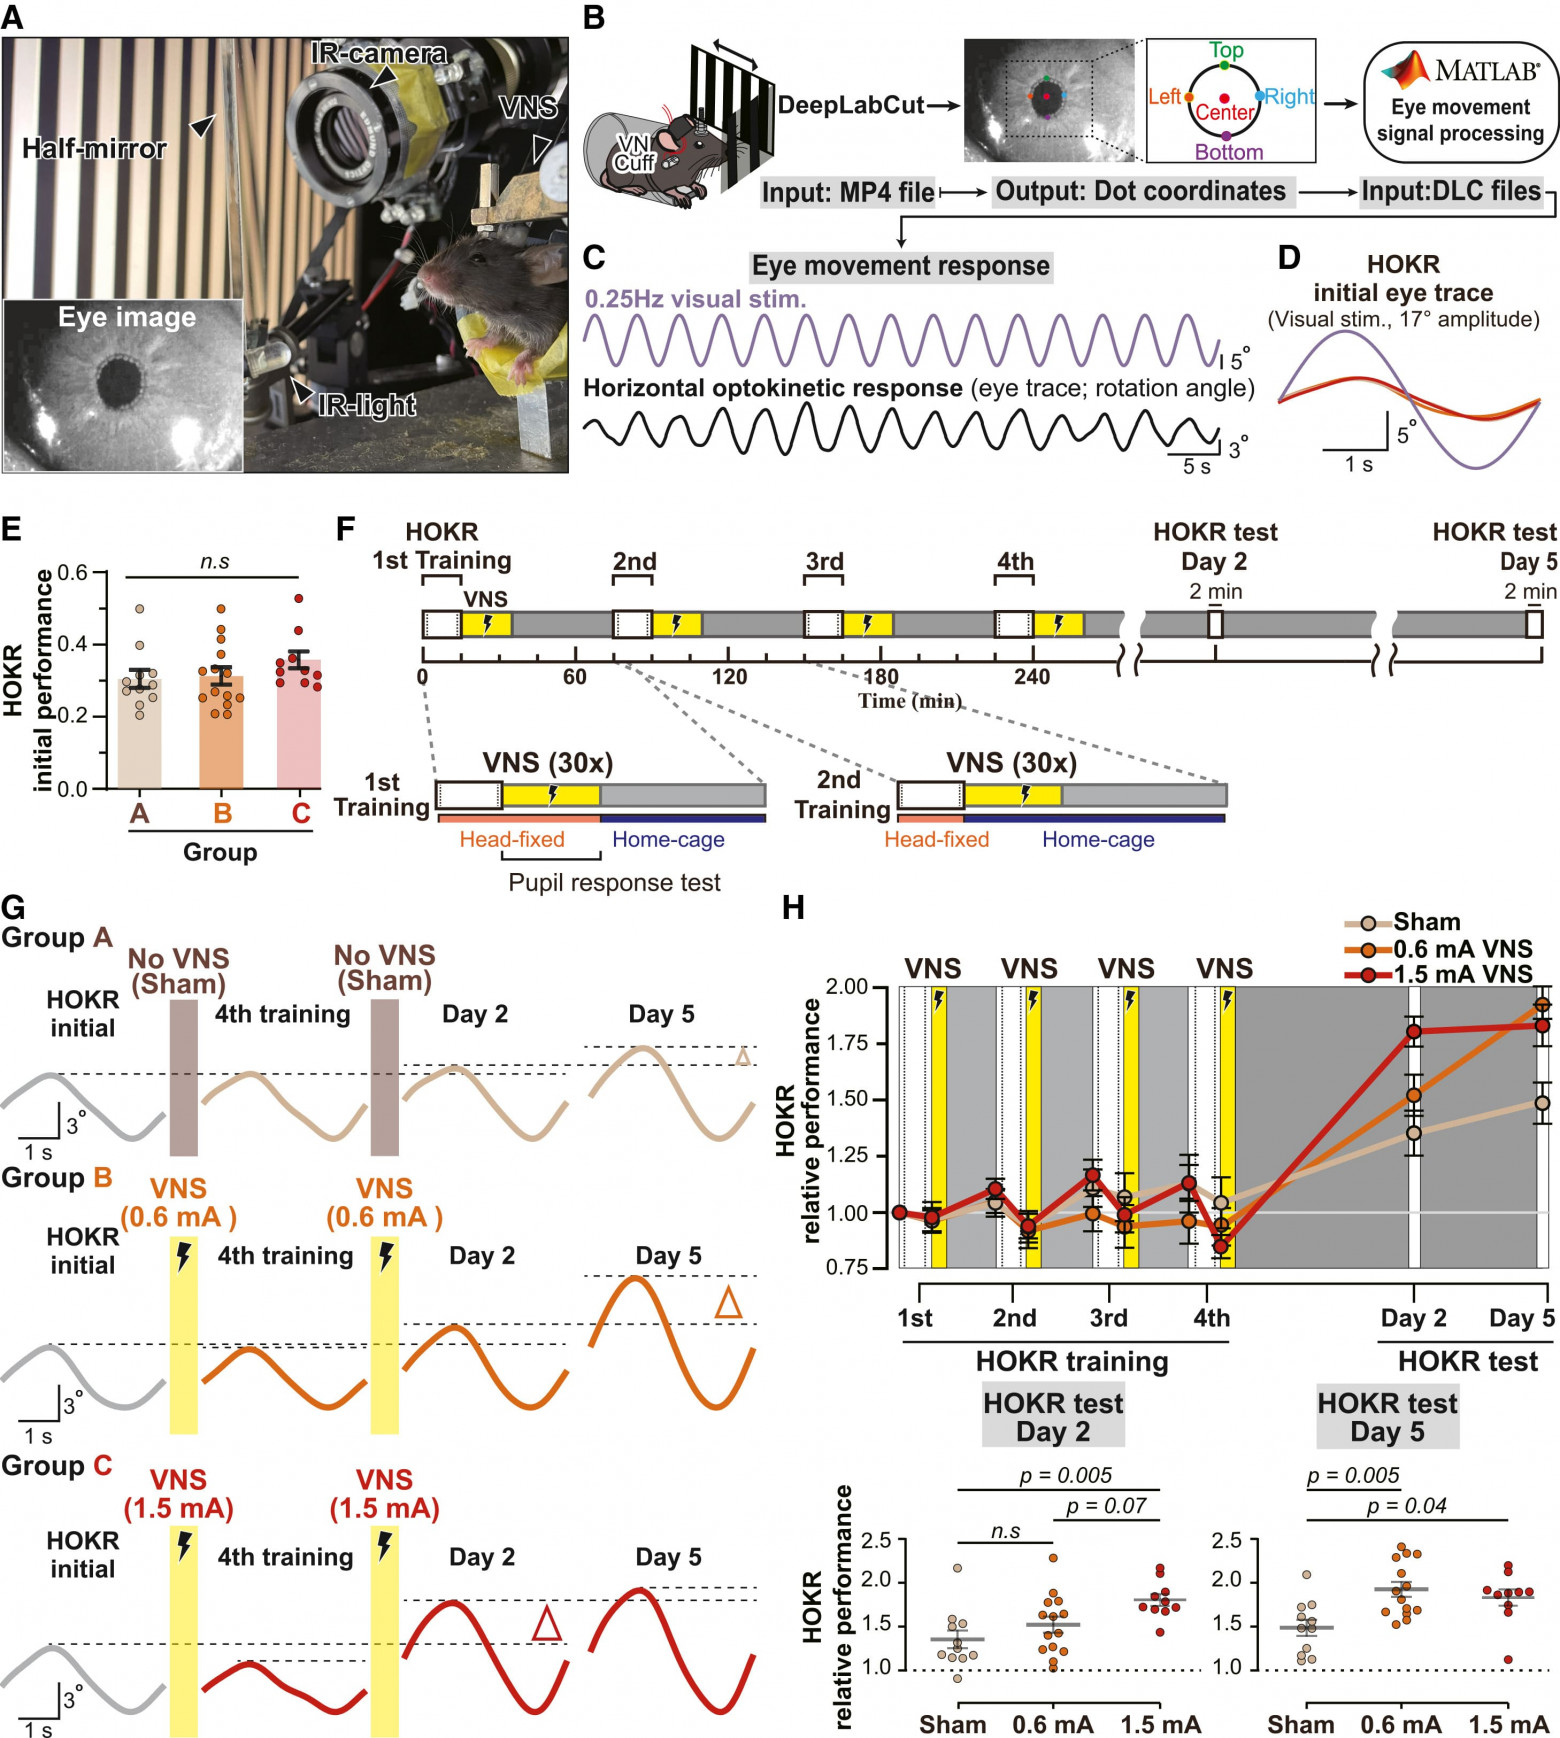
Для проверки когнитивных эффектов была задействована парадигма моторного обучения на основе горизонтального оптокинетического рефлекса (HOKR), напрямую контролируемого мозжечком. Демонстрация движущихся вертикальных полос заставляла зафиксированных головой мышей демонстрировать HOKR, а специализированные камеры регистрировали траектории и углы поворота глаз (2A–2C). На старте тренировок реакция глаз была слабой, амплитуда — минимальной (2D). Исходная эффективность оценивалась по первым трем минутам самого первого сеанса. На этом этапе все животные проходили идентичные процедуры до случайного распределения по группам (контроль без VNS, VNS 0.6 мА и VNS 1.5 мА; 2E), не имея изначально никаких различий в показателях.
Программа обучения включала четыре сеанса по 15 минут в первый день с часовыми перерывами. Прирост амплитуды в рамках одного сеанса трактовался как обучение «онлайн», а прогресс между сессиями — как обучение «офлайн». Рост показателей от финала четвертой сессии до отсроченных тестов на 2-й и 5-й дни определялся как «позднее офлайн-обучение».
Сразу после завершения каждого тренировочного блока мышам из групп B (0.6 мА) и C (1.5 мА) включали VNS, тогда как контрольная группа A подвергалась лишь имитации процедуры. В экспериментальных группах специалисты контролировали реакцию зрачков для подтверждения работоспособности стимулятора (2F); особи с аномальными реакциями отсеивались. У контроля исправность электродов проверялась уже после итогового теста на 5-й день. После освобождения от фиксации головы мыши из групп VNS получали порцию стимуляции в условиях свободного перемещения.
Многофакторный дисперсионный анализ со смешанными эффектами выявил достоверное взаимодействие между этапом обучения и параметрами VNS (2H). В контрольной группе в первый день не фиксировалось значимого прогресса ни в онлайн-, ни в офлайн-фазах. Тем не менее, к 2-му и 5-му дням проявился некоторый отсроченный прогресс, хотя он расходился с результатами прошлых наблюдений.
Аналогичное отсутствие мгновенных сдвигов в первый день наблюдалось и в группах с VNS, что доказывает отсутствие прямого влияния стимуляции на скорость обучения непосредственно во время нагрузок. Однако апостериорный тест Тьюки показал, что VNS избирательно и мощно подстегивает позднее офлайн-обучение HOKR, причем этот бонус зависел от дозы: в группе C эффект проявился уже на 2-й день, а в группах B и C — на 5-й день.
VNS вызывает динамику объема крови в клочке мозжечка
Изображение №3
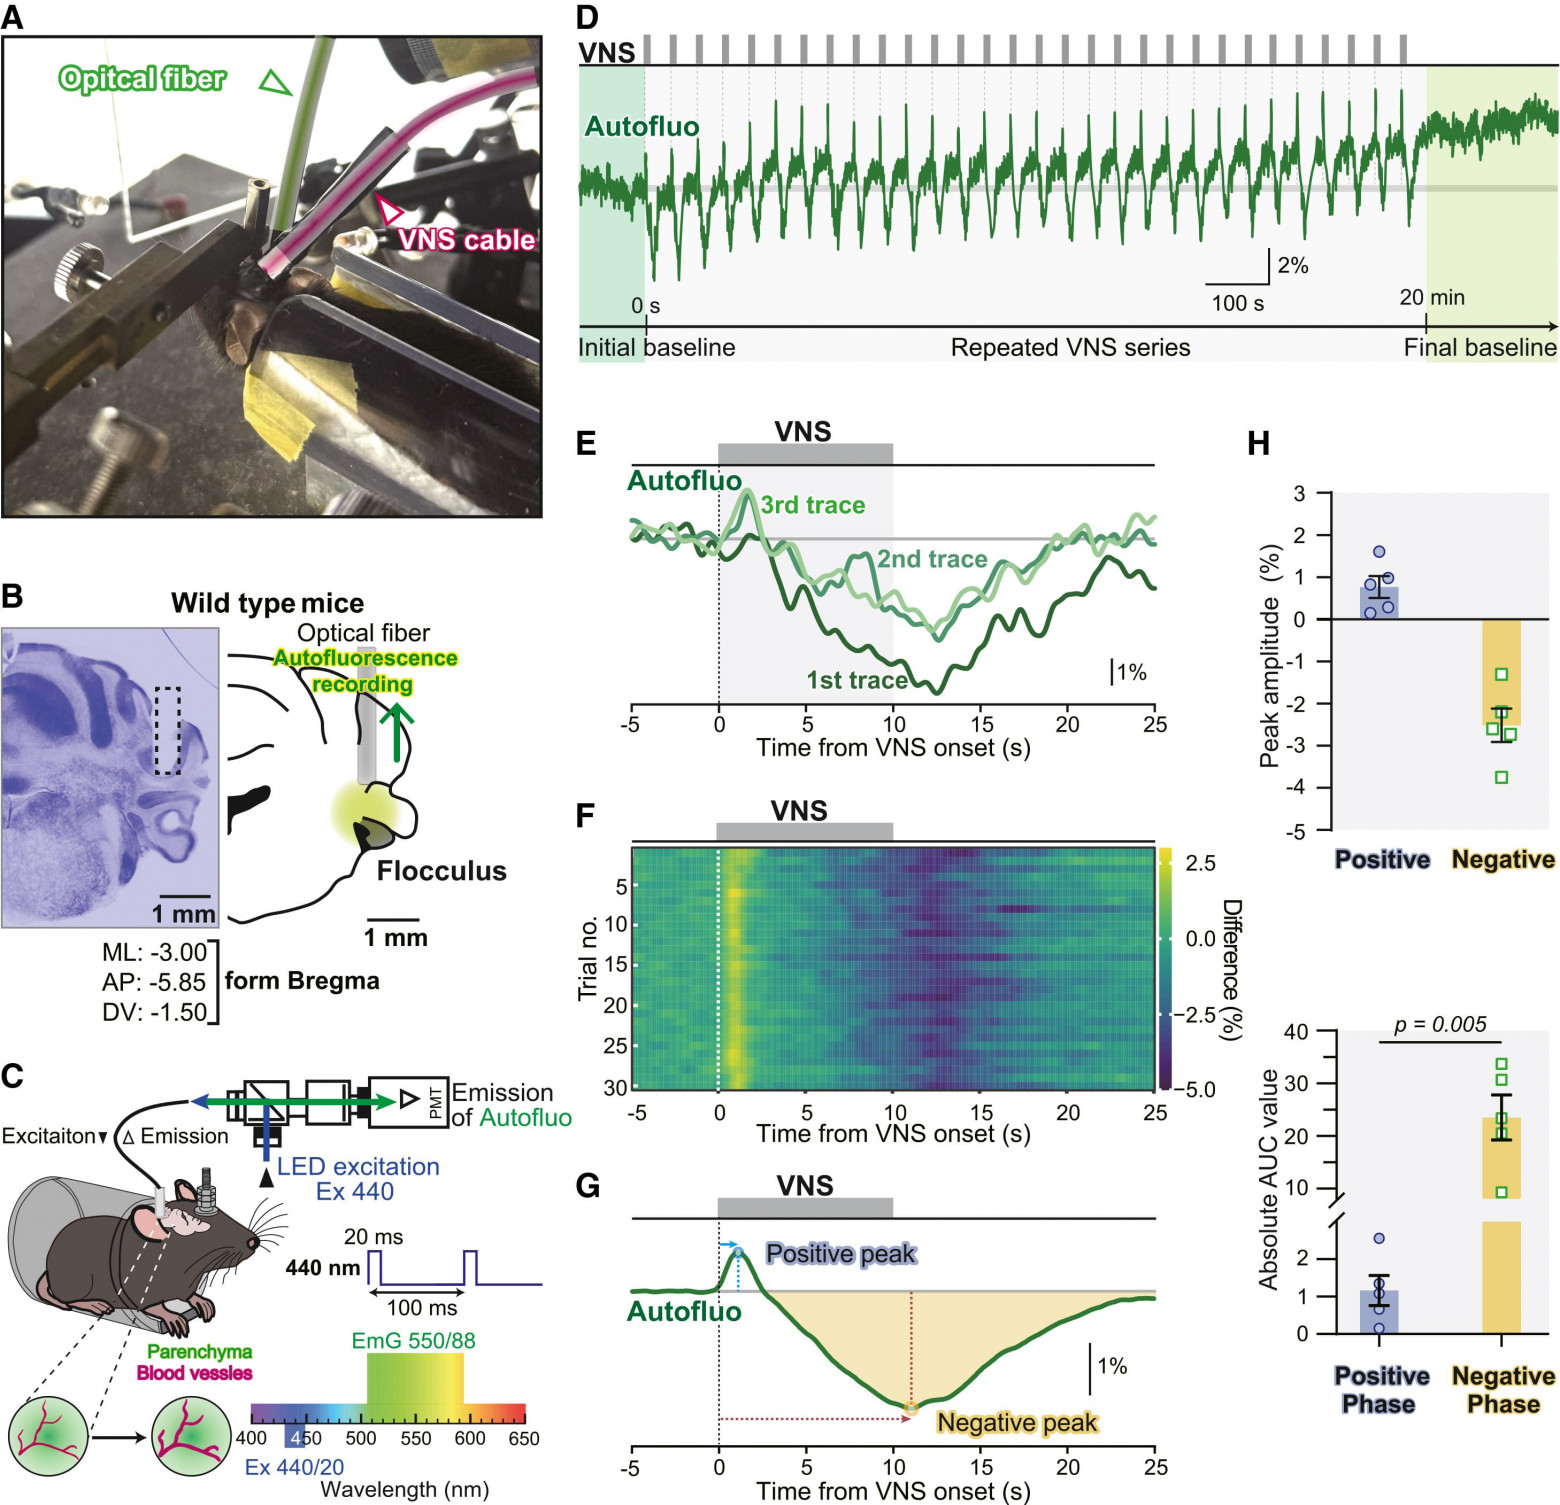
С целью мониторинга сосудистых сдвигов при VNS исследователи отслеживали колебания объема крови (BBV) в ключевой зоне мозжечка — флоккулюсе. Применялся метод теневой визуализации на базе аутофлуоресценции паренхимы, интенсивность которой падала внутри сосудов из-за поглощения света гемоглобином (3A–3C), что ранее было успешно верифицировано фотометрией. Серии импульсов VNS вызывали четко воспроизводимые колебания сигнала вблизи имплантированного в мозжечок оптического волокна (3D–3F). Ответ носил двухфазный характер: быстрый подъем сменялся глубоким отсроченным спадом (3G), причем амплитуда отрицательной фазы существенно превосходила положительную (3H).
Детальный анализ показал, что максимальная глубина спада фиксировалась в ходе первых проб VNS, оставаясь в целом стабильной на протяжении всей серии. Напротив, латентный период наступления этого спада постепенно увеличивался по мере накопления повторов. Кроме того, у разных особей глубина спада имела обратную корреляцию с задержкой его пика при равной силе тока.
Прямая визуализация динамики объема сосудов мозжечка, вызванной VNS
Изображение №4
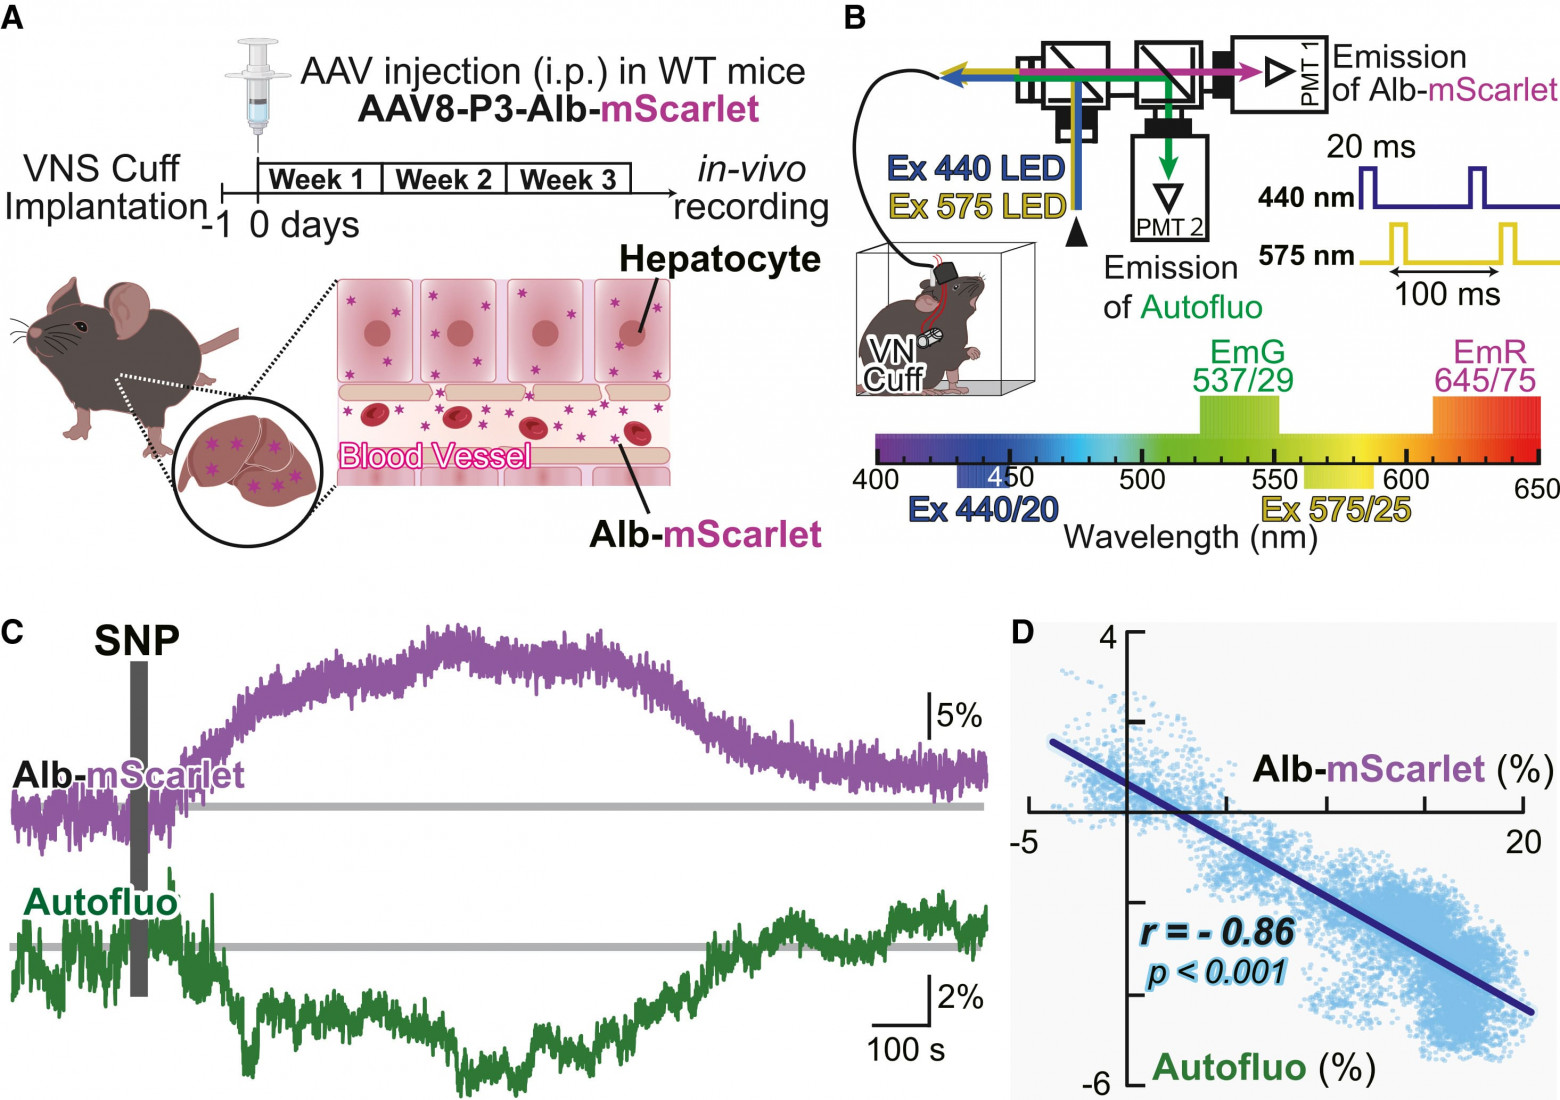
Для прямой оценки сосудистой геометрии мышам вводили аденоассоциированный вирус, заставляющий печень синтезировать химерный белок Alb-mScarlet (альбумин с флуоресцентной меткой), который циркулировал в кровотоке, позволяя напрямую мерить объем сосудов (4A). Двухканальная оптика фиксировала аутофлуоресценцию и сигнал белка при длинах волн 440 и 575 нм (4B). Введение сосудорасширяющего препарата (нитропруссида натрия) ожидаемо повышало яркость метки Alb-mScarlet на фоне падения аутофлуоресценции, подтверждая обратную зависимость между этими маркерами (4C и 4D).
Изображение №5
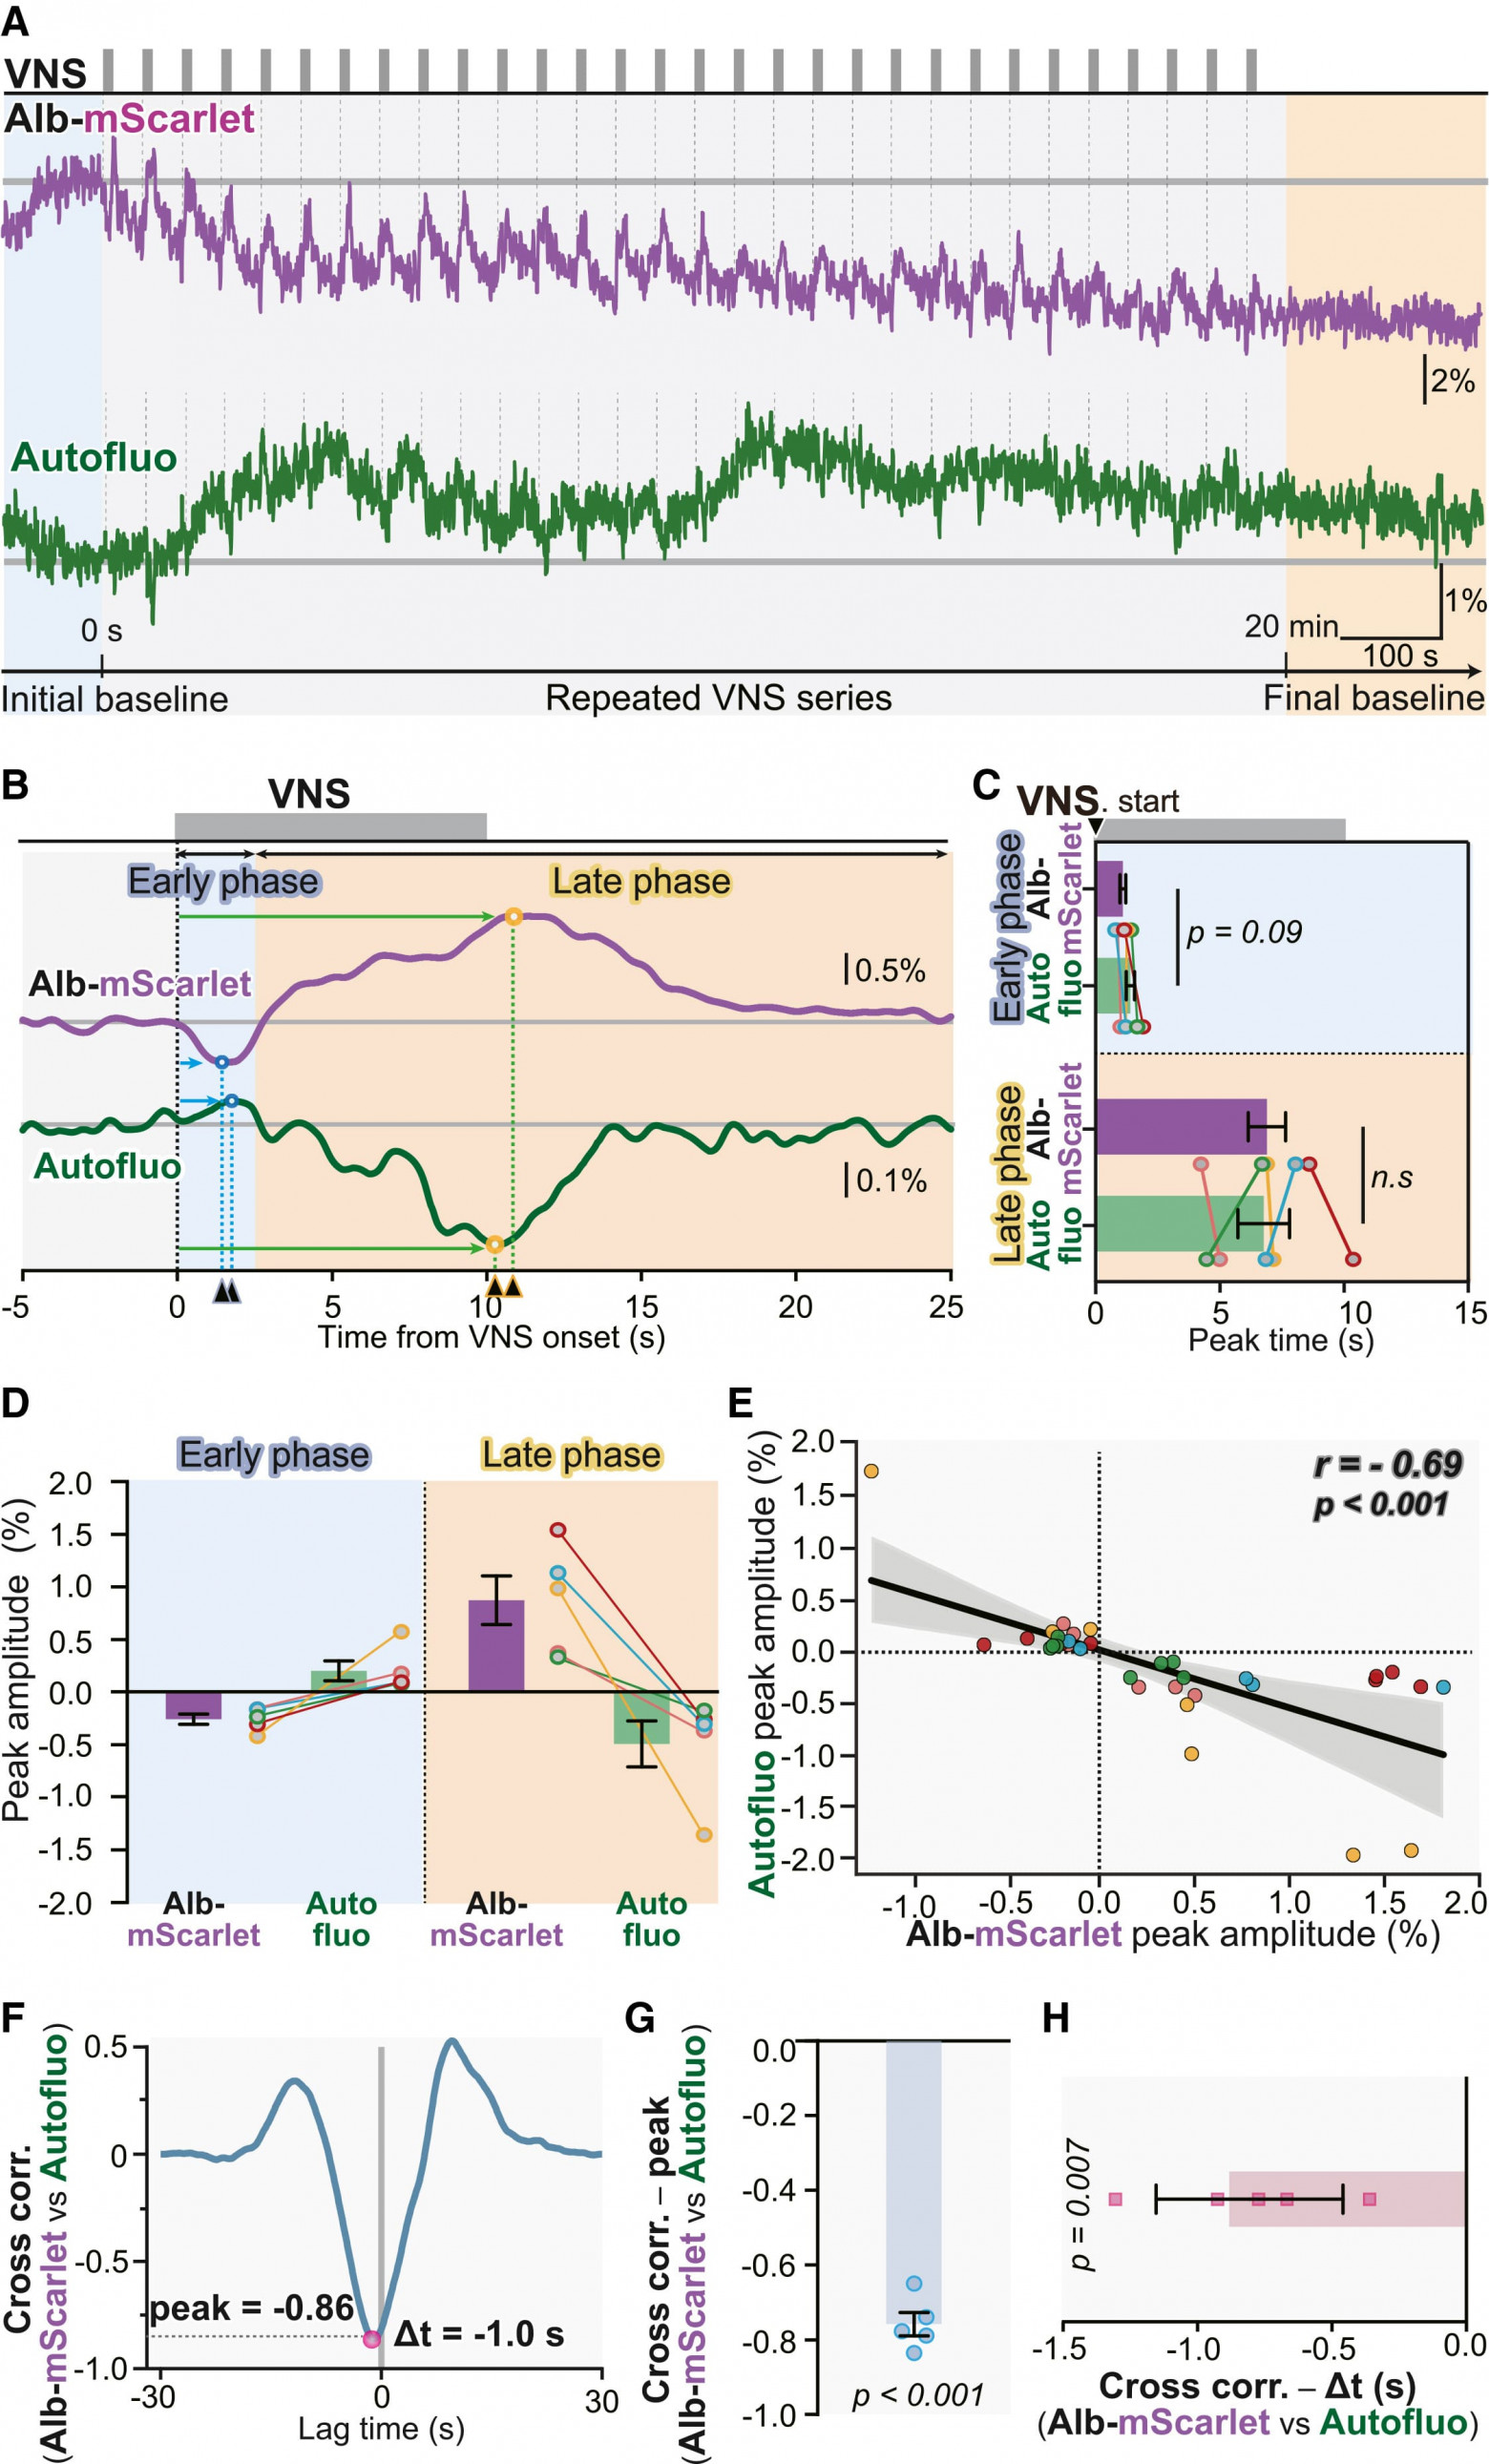
Во время сеансов VNS каждый импульс провоцировал двухфазные колебания Alb-mScarlet: начальный спад сменялся отложенным подъемом. Эта картина зеркально отражала аутофлуоресценцию, хотя и не являлась ее абсолютной копией — фиксировались небольшие временные смещения пиков (5A–5C) и сильная отрицательная корреляция амплитуд (5D и 5E). Рост силы тока усиливал оба сигнала вплоть до выхода на плато насыщения, причем краниальное положение катода давало более выраженный отклик.
Перекрестно-корреляционный анализ выделил устойчивый отрицательный пик между сигналами с временным сдвигом около −1.0 с (5F–5H). Базовые уровни аутофлуоресценции постепенно нарастали из-за кумулятивного эффекта повторных стимуляций, в то время как метка Alb-mScarlet оставалась стабильной.
Данные факты доказывают, что VNS запускает в мозжечке строго упорядоченные сосудистые реакции. Тонкие расхождения между меткой и аутофлуоресценцией могут объясняться не только оптическим эффектом «затенения», но и динамикой метаболически активных молекул, например флавинов.
Колебания объема сосудов после тренировки связаны с результатами долгосрочного обучения в рамках HOKR
Изображение №6
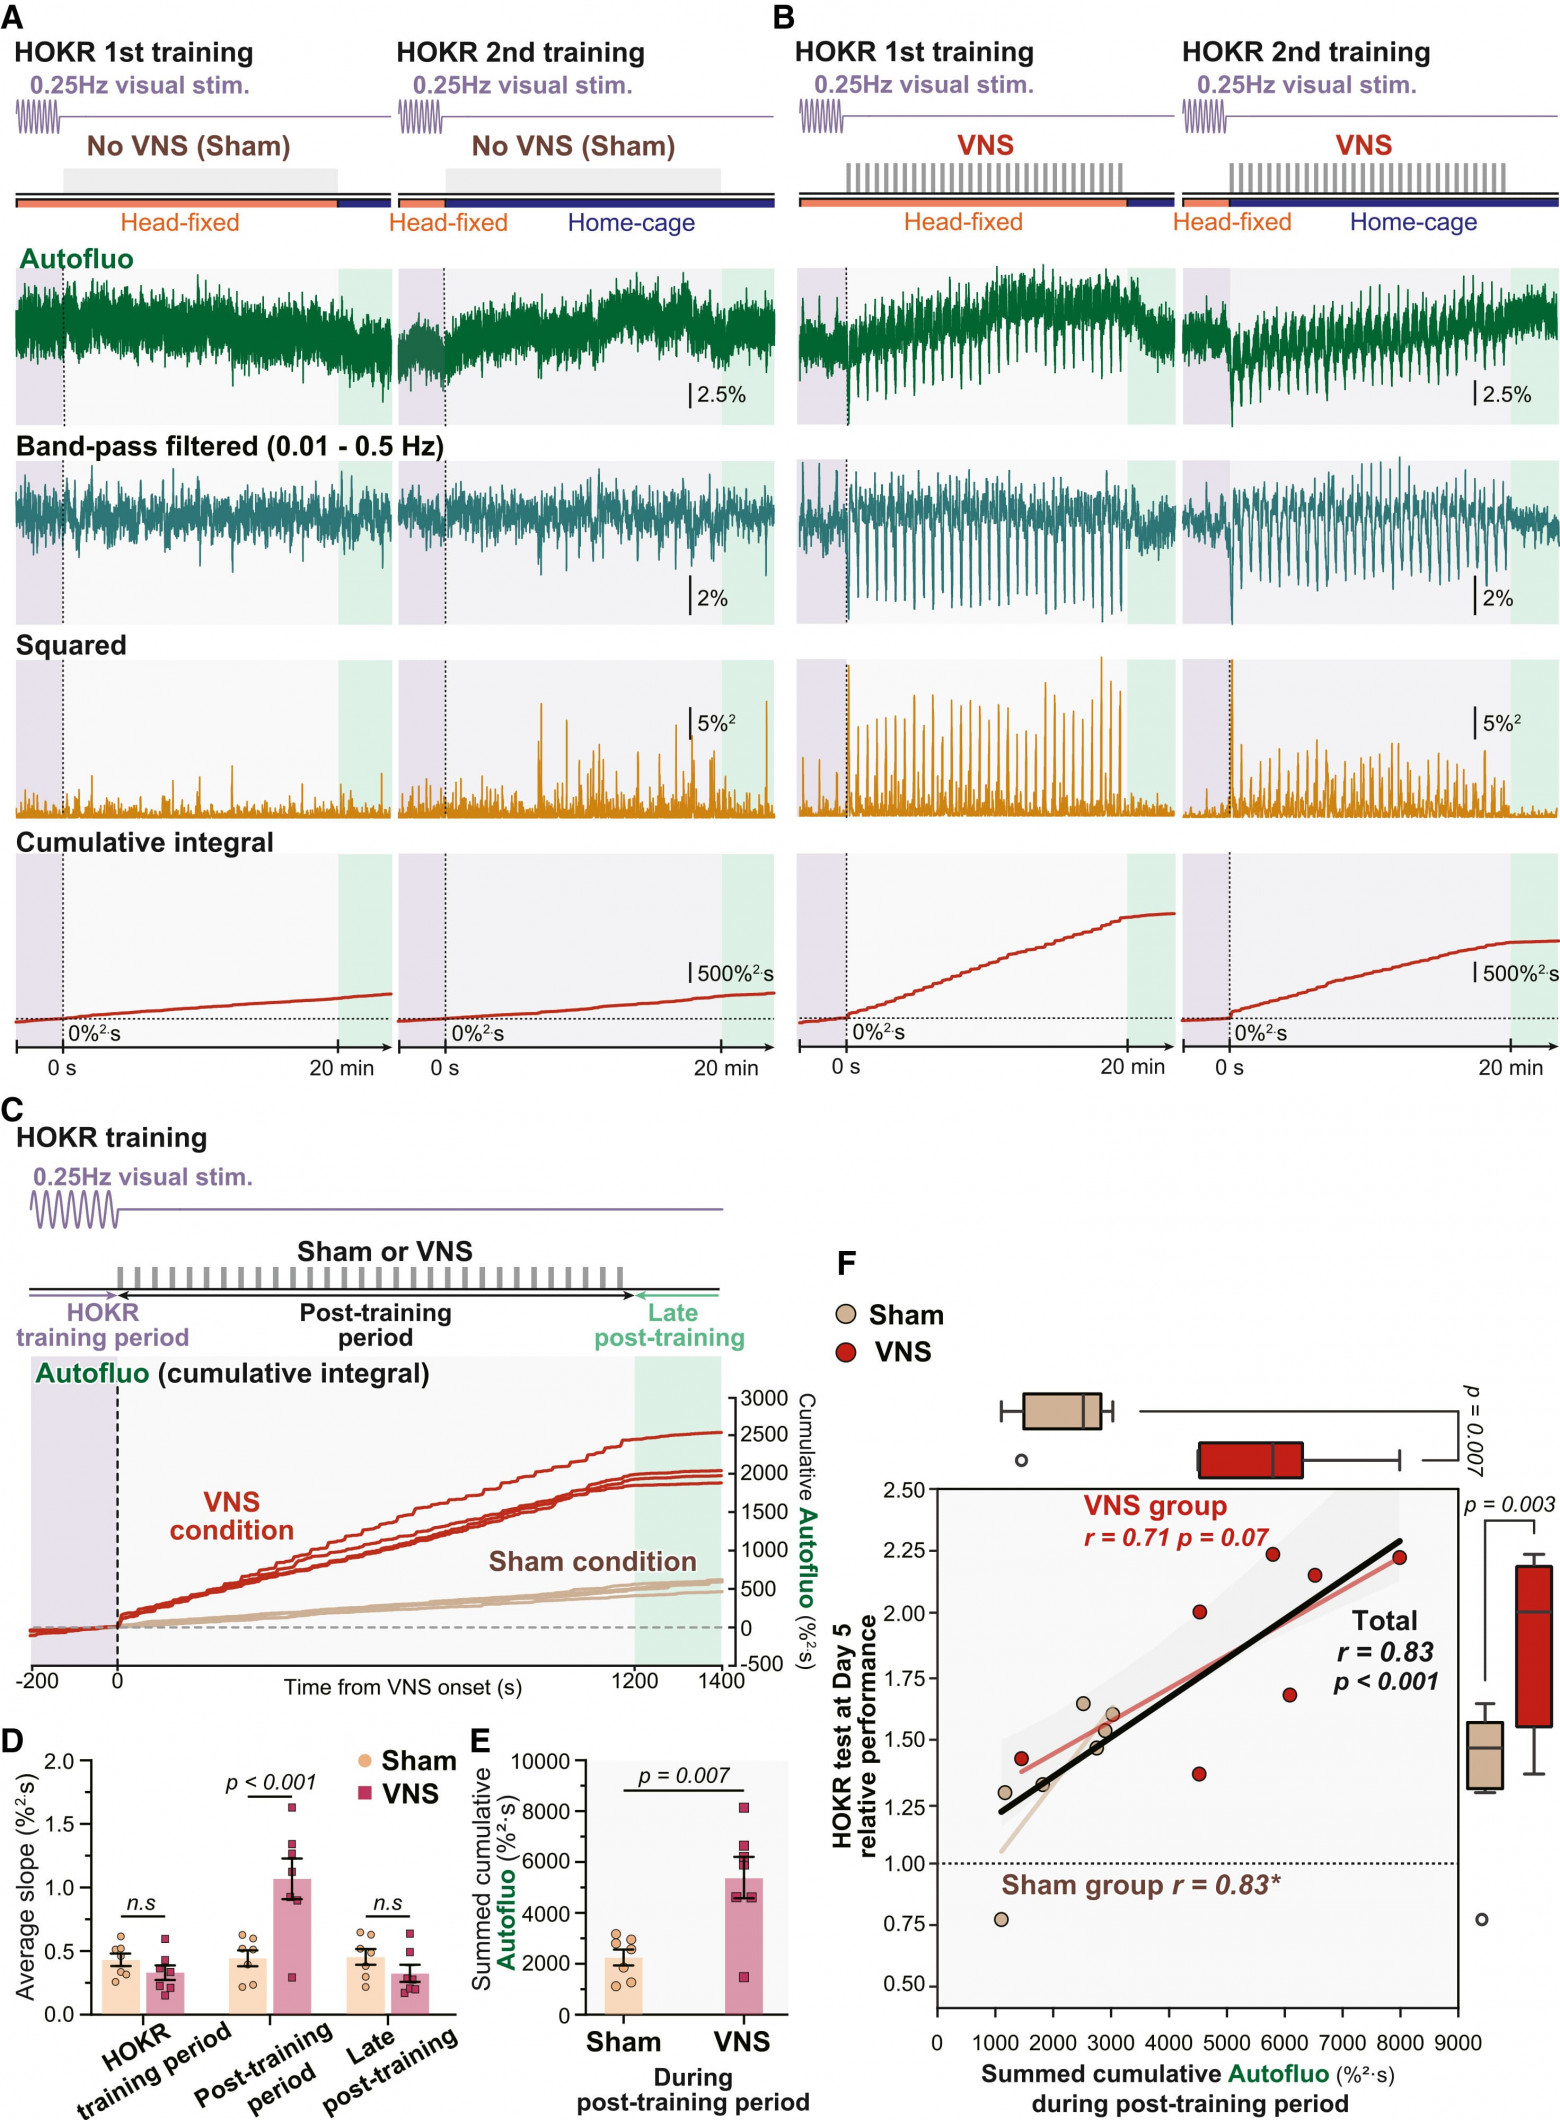
Для математической оценки сосудистых флуктуаций после HOKR-тренировок сигналы аутофлуоресценции из флоккулюса фильтровались, возводились в квадрат и интегрировались (6A и 6B). Колебания фиксировались у всех животных, но VNS существенно наращивала их размах (6C). Средний наклон кривой сразу после тренировки в группе VNS был значительно выше контрольного. Суммарная амплитуда колебаний на протяжении первых четырех сессий также превосходила показатели группы имитации (6D и 6E).
Сопоставление амплитуды осцилляций с результатами тестов на 5-й день выявило прямую зависимость. В контрольной группе обнаружилась значимая положительная связь, намекающая на важность естественных сосудистых ритмов для пластичности. В группе VNS эта тенденция усиливалась, а при объединении массивов данных корреляция становилась еще более очевидной (6F). Итоговые показатели HOKR у мышей с током 1.5 мА закономерно превосходили плацебо-контроль, подтверждая, что усиленные VNS сосудистые волны напрямую сопряжены с качеством долгосрочного усвоения навыка.
Для углубленного изучения методологии и деталей экспериментов читатели могут ознакомиться с оригинальным отчетом и дополнительными материалами.
Эпилог
В представленной работе исследователи протестировали метод стимуляции блуждающего нерва для проверки его способности улучшать консолидацию моторных навыков.
Процесс приобретения новых умений сложен и многогранен, завися как от внешних условий, так и от текущего физиологического состояния мозга.
Обучение неразрывно связано с общим состоянием организма. Внутренние органы постоянно отправляют сигналы в ЦНС по блуждающему нерву. Эксперименты на мышах показали, что искусственное усиление этих импульсов после тренировки укрепляет моторную память. Это подчеркивает недооценивавшуюся ранее роль соматических сигналов в когнитивных процессах.
Будучи главной магистралью связи между мозгом и периферией, блуждающий нерв транслирует двусторонний поток информации. Воздействие на него в рамках VNS уже нашло клиническое применение, однако механизмы его влияния на когнитивные функции исследовались мало.
Раньше VNS считалась лишь средством нейромодуляции медиаторных систем. Новые данные открывают еще один механизм — запуск ритмических изменений в сосудистом русле мозга.
Для проверки этой гипотезы ученые имплантировали миниатюрный электрод мышам и совмещали VNS с тренировками зрительно-моторного рефлекса HOKR, похожего на автоматическое слежение глазами за движущимся за окном поездом.
Стимуляция подавалась не в ходе занятий, а после них. Мгновенного скачка результативности не наблюдалось, однако в последующие дни тренированные особи демонстрировали значительно более прочное закрепление навыка.
Анализ мозговой ткани выявил двухфазную сосудистую реакцию в мозжечке: сначала объем крови падал, а затем возрастал, переходя в ритмические колебания. У мышей с наиболее выраженными сосудистыми волнами результаты к пятому дню были самыми высокими, связывая циркуляторные изменения с долгосрочной памятью.
В перспективе авторы намерены оптимизировать протоколы стимуляции, чтобы точнее понять механизмы соматической регуляции синаптической пластичности и эффективнее управлять процессами запоминания.
Немного рекламы
Спасибо, что остаетесь с нами. Вам нравятся наши статьи? Хотите видеть больше интересных материалов? Поддержите нас, оформив заказ или порекомендовав знакомым, облачные VPS для разработчиков от $4.99, уникальный аналог entry-level серверов, который был придуман нами для Вас: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны варианты с RAID1 и RAID10, до 24 ядер и до 40GB DDR4).
Dell R730xd в 2 раза дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — от $99! Читайте о том Как построить инфраструктуру корп. класса c применением серверов Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки?
Похожие статьи
 Космический атлас для тех, кому надоела Земля
 Почему искусственный интеллект признает свои ошибки только после того, как их укажете вы: разбор реального экзамена
 Бессмертие как услуга: от цифровой личности к цифровой цивилизации
 Марк Камионковский: тайны темной энергии и космические загадки
 Атипичная мигрень: клинический случай из практики невролога
 Гигантское марсианское облако длиной 1600 км подчиняется неизвестной Земле экзотической физике
 Математика, физика и реальность: Неразрешимая математическая загадка
 Столетняя загадка струн Бете наконец решена